

Polisaharidi Cistanche Deserticola imaju neuroprotektivni efekat
Mar 19, 2022
za više informacija:Ali.ma@wecistanche.com
Yue Liu, et al
sažetak:
Ishemijski moždani udar je bolest sa visokim morbiditetom i mortalitetom.Cistanchedeserticolapolisaharidi(CDP) poseduju širok spektar korisnih efekata, uključujući hepatoprotekciju i imunološku homeostazu. Koliko je poznato, zaštitni efekat CDP-a(Cistanchedeserticolapolisaharidi)na neuronima oštećenim deprivacijom/reperfuzijom kiseonika i glukoze (OGD/RP) nije istražen. U ovoj studiji, OGD/RP je ozlijedio model PC12 ćelije. Ukratko, CDP(Cistanchedeserticolapolisaharidi)({{0}}.05, 0,5 i 5 ug/ml) je primijenjen prije reperfuzije. Zaštitni efekat CDP-a(Cistanchedeserticolapolisaharidi)je zatim procijenjen na osnovu vitalnosti ćelije, curenja laktat dehidrogenaze (LDH), [Ca2 plus ] I, potencijala mitohondrijske membrane (MMP) i apoptoze ćelije, andredox status nakon reperfuzije je procijenjen analizom reaktivnih vrsta kisika (ROS), katalaze ( CAT), glutation peroksidaza (GSH-Px) i ukupni antioksidativni kapacitet. Na osnovu činjenice da protein DJ-1 povezan sa Parkinsonovom bolešću učestvuje u endogenoj antioksidaciji i vršineuroprotektivniefekte nakon ishemijskog moždanog udara, istraživali smo interakciju između CDP-a(Cistanchedeserticolapolisaharidi)i DJ{{0}}. Ekspresija DJ-1 je otkrivena ELISA i Western blot analizom, a translokacija DJ-1 je procijenjena imunofluorescencijom. Rezultati su pokazali da je CDP (0.05, 0.5 i 5 ug/ml) oslabio PC12 ćelijsku smrt, sačuvao MMP i homeostazu kalcijuma; inhibirao oksidativni stres i smanjio apoptozu stanica. Štaviše, CDP (5 ug/ml) je značajno stimulirao DJ{10}} lučenje i ekspresiju. Sve u svemu, rezultati sugeriraju da CDP(Cistanchedeserticolapolisaharidi)vrši aneuroprotektivniefekat protiv povreda izazvanih OGD/RP inhibiranjem oksidativnog stresa i regulacijom DJ-1 puta
Ključne riječi:Cistanche deserticola, polisaharidi, neuroprotektivni, deprivacija/reperfuzija glukoze kiseonikom, oksidativni stres DJ-1

Click to Cistanche UK proizvodi
1. Uvod
Ishemijski moždani udar je drugi vodeći uzrok smrtnosti i primarni uzrok dugotrajne invalidnosti u svijetu [1]. Očekuje se da će smrtnost od moždanog udara porasti na 7,8 miliona u 2030. [2]. U Kini, 58 do 142 na 100,000 ljudi umire od moždanog udara svake godine. Stoga se moraju razviti efikasne strategije za preokrenutu ishemijsko-reperfuzijsku ozljedu. Opsežni dokazi potvrđuju da je oksidativni stres glavni faktor koji potiče razvoj i napredovanje cerebralnog infarkta tokom reperfuzije[3,4]. Stoga, otkrivanje efektivnoneuroprotektivniagensi sposobni da smanje ROS i suzbiju oksidativni stres privukli su značajan interes u istraživanjima. Protein DJ-1 povezan s Parkinsonovom bolešću posreduje u neuroprotekciji stimulirajući anti-apoptotičku i antioksidativnu ekspresiju gena [4,5]. DJ-1 se može translocirati u mitohondrije oksidativnim stresom i stimulacijom mitogenom i može se izlučiti u ekstracelularni matriks pod patološkim stanjima, kao što su rak dojke, melanom i OGD/RP ozljeda [6]. Štaviše, DJ-1 je koristan u terapijskom ciljanju za ishemijsku neurodegeneraciju zbog svoje ključne uloge u antioksidaciji [4,7]. U proteklih 10 godina, nekoliko grupa je potvrdilo da DJ-1 imaneuroprotektivniefekti na modele in vivofokalne cerebralne ishemije i in vitro OGD/RP modele [6–9]. U međuvremenu, neki lijekovi, uključujući ciklosporin A i natrijum fenilbutirat, poništavaju smrt neuronskih ćelija putem DJ-1 upregulacije inishemijskog moždanog udara [9,10 ].
Cistanchedeserticola, integralna osušena biljkaCistanchedeserticolaYCMa i Cistanche tubulosa Wight, proizvodi se uglavnom u pustinjskim područjima sjeverne i sjeverozapadne Kine [11]. C. deserticola je jestiva i cijenjena je kao "pustinjski ginseng". U receptu za akupunkturu, itis se koristi za liječenje hronične bubrežne bolesti, seksualne impotencije, ženske neplodnosti, leukoreje, metroragije i senilnog zatvora [12].C. deserticola polisaharidi, glavna aktivna komponenta izolirana izCistanche deserticola. CDP, modulira imunološku funkciju i balans lipida i pruža zaštitu od starenja, oksidacije i oštećenja jetre. Štaviše, CDP(Cistanchedeserticolapolisaharidi)sprječava ishemijsko-reperfuzijsku ozljedu u srcu i jetri [13,14]. Nedavne studije su objavile da je CDP(Cistanchedeserticolapolisaharidi)su netoksični[12,15,16] i druge fitokemikalije ekstrahovane iz C. Deserticola, uključujući ehinakozid, izoakteozid, akteozid i salidrozid, pokazujuneuroprotektivniefekti [11,12]. Međutim, potencijalna upotreba CDP-a za ublažavanje oštećenja od ishemijskog moždanog udara do sada nije prijavljena.
U ovoj studiji postavljamo hipotezu da CDP(Cistanchedeserticolapolisaharidi)inhibira oksidativni stres za neuroprotekciju. Potencijalni zaštitni efekti CDP-a(Cistanchedeserticolapolisaharidi)oštećenje inishemijom od moždanog udara ispitano je korištenjem PC12 ćelija ozlijeđenih OGD/RP. Zatim su istražene osnovne interakcije povezane s DJ-1.
2. Metode
2.1. Ćelijska kultura i OGD/RP model
PC12 ćelije su uzgajane u RPMI 1640 medijumu koji sadrži 10 procenata FBS na 37 stepeni u normoksičnom inkubatoru koji sadrži 5 procenata CO2. Medij se mijenjao svakih 48 h. Pripremljen je OGD/RP model. PC12 ćelije su isprane i izložene Earleovom izbalansiranom rastvoru soli. Zatim su ćelije prebačene u anaerobnu komoru koja sadrži 5 procenata CO2 i 95 procenata N2 na 37 stepeni tokom 4 h, a zatim ostavljene da se podvrgnu reoksigenaciji. Tokom ovog koraka, ćelijama je dodan isti volumen medijuma za kulturu. Nakon reoksigenacije, ćelije su stavljene u normoksični inkubator na 24 h.
2.2. Administracija lijekova
CDP(Cistanchedeserticolapolisaharidi)je kupljen od Yuanye Biological Technology Co., Šangaj, Kina (C23J7Y18405, > 98 posto čistoće). Nimodipin, lijek prve linije za prevenciju ishemijskog moždanog udara, korišten je kao pozitivna kontrolna spojina [17–19]. Injekcija nimodipina je od kompanije Bayer. Ćelije su nasumično podijeljene u šest grupa i to kontrolna, vehikulum (OGD/RP), Nimo (5 ug/ml), CDP(Cistanchedeserticolapolisaharidi)(0.05 ug/ml), CDP(Cistanchedeserticolapolisaharidi)(0.5 ug/ml) i CDP (5 ug/ml). Nimodipin i CDP(Cistanchedeserticolapolisaharidi)su dodani prije reperfuzije. Kontrolna grupa je uzgajana u normalnoj podlozi i inkubirana u normoksičnim uslovima.
2.3. Vijabilnost ćelije: MTT i NRU testovi
PC12 ćelije (6 × 10³ po jažici) su posađene u ploču za kulturu 96-jažica. Ćelije su tretirane u skladu sa zahtjevima svake grupe. MTT (Solarbio, Kina) je dodat ćelijama u koncentraciji od 5 mg/ml i inkubiran 4 h na 37 stepeni. Formazan je produkt redukcije sukcinat dehidrogenaze u živim stanicama [20]. DMSO je dodat za otapanje nastalog plavog formazana. Apsorpcija na talasnoj dužini od 490 nm detektovana je sa Microplate Reader-om (Thermo, SAD) nakon što su ćelije mućkane 10 minuta na 25 stepeni. Rezultati vijabilnosti ćelija su se manifestovali kao procenat u odnosu na kontrolnu grupu [21].
Test neutralnog unosa crvene boje (NRU) izveden je prema prethodno objavljenom protokolu [22]. Kada su periodi reperfuzije završeni, ćelijama je dodana neutralna crvena (Solarbio, Kina) u koncentraciji od 50 ug/ml. Smjesa je inkubirana 3 h. Zatim su ćelije brzo isprane rastvorom koji sadrži 0,5 posto formaldehida i 1 posto kalcijum hlorida. Ćelije su zatim dodane u smjesu koja je sadržavala 1 posto etilne kiseline i 50 posto anhidroetanola. Ploče su očitane pri apsorbanciji od 540 nm nakon što su ćelije mućkane 20 minuta na 37 stepeni. Rezultati vijabilnosti ćelija ispoljili su se kao procenat u odnosu na kontrolnu grupu.
Cistanche deserticola polisaharidiimati aNeuroprotektivni efekat
2.4. Procjena citotoksičnosti
LDH je citoplazmatski enzim koji katalizuje oksidaciju laktat topiruvata. LDH se brzo oslobađa u ekstracelularnu tečnost kada je ćelijska membrana oštećena. Stoga se detekcija LDH obično izvodi za procjenu citotoksičnosti. [23]. Eksperimentalna procedura je slijedila upute za komercijalni komplet koje je isporučio komplet za LDH (Jiancheng, Kina). Apsorbancija svakog uzorka je detektirana na 440 nm čitačem mikroploča. Procenat ćelijske smrti je izračunat korišćenjem sledeće formule: Viabilnost ( procenat )=(OD tretman − blanko ODT tretman)/(OD maksimalna LDH aktivnost − OD maksimalna LDH aktivnost prazna) × 100 procenata.
2.5. Detekcija intracelularne koncentracije Ca2 plus
Intracelularna koncentracija Ca2 plus je mjerena sa Fluo-3/AM [15]. PC12 ćelije su isprane sa PBS tri puta i inkubirane sa 2 μM Fluo-3/AM (Beyotime, Kina) 30 minuta na 37 stepeni u mraku. Ćelije su zatim tri puta isprane sa PBS-om za čišćenje ekstracelularne boje. Intenzitet fluorescencije Fluo-3/AM određen je na laserskom skenirajućem konfokalnom mikroskopu (Olympus, Japan). Softverski paket Olympus FV10-ASW 4.1 Viewer i ImageJ su korišteni za izračunavanje vrijednosti sivih skala
2.6. Mjerenje MMP
JC-1 (5,5′,6,6′-tetrakloro-1,1′,3,3′-tetraetil-imidakarbocijanin; Beyotime, Kina) je pogodna sonda osjetljiva na napon koja se općenito koristi za bojenje ćelije i evaluacija MMP [24]. PC12 ćelije su isprane dva puta hladnim PBS-om i zatim inkubirane sa mešavinom koja sadrži 50 procenata medijuma i 50 procenata radne tečnosti tokom 15 minuta na 37 stepeni u mraku. Zatim je smeša odbačena i zamenjena svežom podlogom. Slike crvene i zelene fluorescencije snimljene su laserskim skenirajućim konfokalnim mikroskopom. Za mjerenje MMP korišten je relativni udio crvenih i zelenih fluorescentnih signala [25]. Softverski paket Olympus FV10-ASW 4.1 Viewer i ImageJ korišteni su za izračunavanje vrijednosti sivih skala.
2.7. Test detekcije apoptoze, Hoechest33342 i analiza protočne citometrije
Hoechst33342, boja koja se vezuje za DNK, korištena je za ispitivanje apoptoze ćelije [26]. Nakon reperfuzije, PC12 ćelije su tri puta isprane sa PBS i inkubirane sa Hoechst33342 (Beyotime, Kina) u koncentraciji od 5 ug/ml tokom 15 minuta na 37 stepeni u mraku. Zatim su ćelije posmatrane pod laserskim skenirajućim konfokalnim mikroskopom. Teapoptotske ćelije su pokazale intenzivnu plavu fluorescenciju i kondenzaciju jezgra. Za svaki eksperiment bojenja, tri nasumična polja su uhvaćena i kvantificirana. Olympus FV10-ASW 4.1 Viewer i ImageJ su korišteni za izračunavanje vrijednosti sivih skala. Procenti apoptotičkih ćelija izračunati su po sljedećoj formuli: apoptotska količina/ukupna količina × 100 posto [27].
2.8. Mjerenje generacije ROS
Fluorescentna sonda 2′,7′-dihlorofluorescein-diacetat (DCFH-DA; Jiancheng, Kina) može prodrijeti kroz ćelijske membrane i može se hidrolizirati u nefluorescentni DCFH. DCFH se oksidira intracelularnim ROS u fluorescentni DCF [29]. Nakon reperfuzije, ćelije su dva puta isprane sa PBS-om i zatim inkubirane sa DCFH-DA u konačnoj koncentraciji od 10 μM tokom 45 minuta na 37 stepeni u mraku. Fluorescencija je opažena fluorescentnim spektrofotometrom sa talasnom dužinom ekscitacije od 485 nm i talasnom dužinom emisije od 535 nm.
Cistanche deserticola polisaharidiimati aNeuroprotektivni efekat
2.9. Određivanje indikatora oksidativnog stresa: CAT, GSH-Px i T-AOC nivoi
Ćelije su ostrugane i resuspendirane u PBS. Dobijene suspenzije ćelija sonikirane su 45 puta na ledu i centrifugirane na 1000 r/min 10 minuta na 4 stepena. Supernatanti su zadržani i korišteni za detekciju [24]. Ukupni sadržaj proteina u ćelijskom supernatantu mjeren je kompletom reagensa za analizu BCA proteina (KeyGEN, Kina). Aktivnosti nivoa CAT, GSH-Px i T-AOC merene su prema uputstvima proizvođača (Jiancheng, Kina). Apsorbancija svakog uzorka je detektirana čitačem mikropločica.
2.10. Mjerenje ekstracelularne DJ-1 koncentracije
PC12 ćelije (6 × 10³ po jažici) su zasijane u 96-ploče za kulturu jažica. Nakon reperfuzije, ćelijski supernatant je sakupljen i analiziran pomoću DJ-1/PARK-7 ELISA kompleta (Raybio, SAD ) prema uputstvu proizvođača [9]. Apsorbancija svakog uzorka je detektovana Microplate Reader-om na dvostrukoj talasnoj dužini od 450 nm ili 540 nm.
2.11. Western blot analiza
Ćelijski proteini su ekstrahovani ledeno hladnim puferom za lizu prema uputstvima proizvođača (KeyGEN, Kina). Koncentracija proteina određena je kompletom reagensa za analizu BCA proteina. Jednake količine proteinskih lizata (20 ug) iz svake grupe su razdvojene u 12-postotnoj elektroforezi natrijum dodecil sulfat-poliakrilamidnog gela i zatim prebačene na nitroceluloznu membranu. Membrana je inkubirana sa PBS-om koji sadrži 5 posto obranog mlijeka 2 h na sobnoj temperaturi, a zatim ispitana anti-PARK7/DJ-1 antitijelima (ab76008, Abcam; razrjeđenje 1:1000) preko noći na 4 stepena. Zatim je membrana isprana tri puta sa PBST i inkubirana sa sekundarnim antitelom kozjeg anti-zečjeg IgG (SA00001-2, Proteintech Group; razblaživanje 1:5000) na sobnoj temperaturi 2 h. Antitijelo anti- -Tubulin (10759-1-AP, Proteintech Group; razrjeđenje 1:1000) smatrano je kontrolom. Proteinske trake su vizualizirane reakcijskim reagensima pojačane hemiluminiscencije (ECL). Gustine traka mjerene su softverom QuantityOne Analysis v.4.6.9.
2.12. Imunocitohemijska analiza
PC12 ćelije su fiksirane u 4 posto paraformaldehida 15 minuta na sobnoj temperaturi nakon reperfuzijskog tretmana [9]. Nakon što je uklonjen višak paraformaldehida, ćelije su inkubirane u PBS-u koji sadrži 0.3 posto Triton X-100 10 minuta na sobnoj temperaturi. Zatim su ćelije isprane sa PBS tri puta pre nego što su inkubirane sa 5% normalnog kozjeg seruma tokom 1 h. Ćelije su zatim inkubirane sa monoklonskim lancem anti-ATP sintaze zeca miša (MABS1304, EMD Millipore, razrjeđenje 1:200) za bojenje mitohondrija i potom inkubirane sa anti-PARK7/DJ{17}} antitijelom (razrjeđenje 1: 100) za sondiranje proteina DJ-1. Ćelije su isprane i inkubirane sa kozjim anti-zečjim IgG-Alexa 488 (zeleno; A11034, Invitrogen; razrjeđenje 1:1000) i kozjim anti-mišjim IgG-Alexa 594 (crveno; A11032; Invitrogen; razrjeđenje 1:100) za 1:90 min. Na kraju, ćelije su isprane tri puta sa PBS-om i postavljene na staklena stakalca sa medijumom za montažu koji sadrži DAPI. Imunofluorescentne slike su vizualizirane korištenjem laserskog skenirajućeg konfokalnog mikroskopa.
Cistanche deserticola polisaharidiimati aNeuroprotektivni efekat
2.13. Podaci/statistička analiza
Sve vrijednosti su prikazane kao srednja vrijednost ± SD. Značajnost je određena jednosmjernom analizom varijanse (ANOVA), nakon čega je uslijedio Dunnettov test višestrukog poređenja. p < .05="" se="" smatralo="" statističkom="" značajnošću.="" eksperimentalni="" podaci="" analizirani="" su="" pomoću="" statističkog="" softvera="" spss="">
3. Rezultati
3.1. CDP(Cistanchedeserticolapolisaharidi)inhibirao oštećenje ćelija izazvano OGD/RP
PC12 ćelije izložene OGD/RP pokazale su značajno smanjenje broja. Oblik ćelije je promijenjen i ćelijska membrana je slomljena. U MTT testu, vitalnost ćelija u CDP(Cistanchedeserticolapolisaharidi)grupe ({{0}}.05, 0.5 i 5 ug/ml) bile su 58.91 posto ± 5.40 posto, 61.13 posto ± 3.81 posto i 68.57 posto ± 3.24 posto respektivno, p < .05="" (slika="" 1a)="" ,="" i="" to="" sa="" vozilom="" 51,68="" posto="" ±="" 3,89="" posto.="" ove="" vrijednosti="" su="" ukazivale="" da="" je="">(Cistanchedeserticolapolisaharidi)štiti ćelije od OGD/RP ozljede i smanjuje smrt stanica. Nadalje, vitalnost ćelija u Nimo grupi bila je 77,02 posto ± 5,22 posto, što je skoro jednako onoj u CDP od 5 ug/ml(Cistanchedeserticolapolisaharidi)tretirana grupa.
U NRU testu, vitalnost ćelija u CDP(Cistanchedeserticolapolisaharidi)grupe ({{0}}.05, 0,5 i 5 ug/ml) su bile 52,03 posto ± 4,72 posto, 58,49 posto ± 2,50 posto i 69,17 posto ± 3,91 posto, respektivno, (slika 1B) i to sa vozilom imao 47,14 posto ± 2,88 posto. Vrijednosti su pokazale zaštitni učinak CDP-a ovisno o koncentraciji.
Za razliku od vozila (44,73 posto ± 3,30 posto), oslobađanje LDH je značajno smanjeno u CDP-u(Cistanchedeserticolapolisaharidi)grupe. U CDP-u(Cistanchedeserticolapolisaharidi)grupe ({{0}}.05, 0.5 i 5 ug/ml), stope curenja LDH su bile 32.41 posto ± 3.70 posto, 27.13 posto ± 2.79 posto i 23.13 posto ± 4.59 posto respektivno, p < .01="" (slika="" 1c).="" štaviše,="" stope="" curenja="" ldh="" u="" nimo="" grupi="" bile="" su="" 21,99="" posto="" ±="" 4,02="" posto,="" što="" je="" bilo="" skoro="" jednako="" onoj="" u="" grupi="" tretiranoj="" sa="" 5="" ug/ml="">

3.2. CDP(Cistanchedeserticolapolisaharidi)oslabljen OGD/RP-indukovano povećanje [Ca2 plus ]i
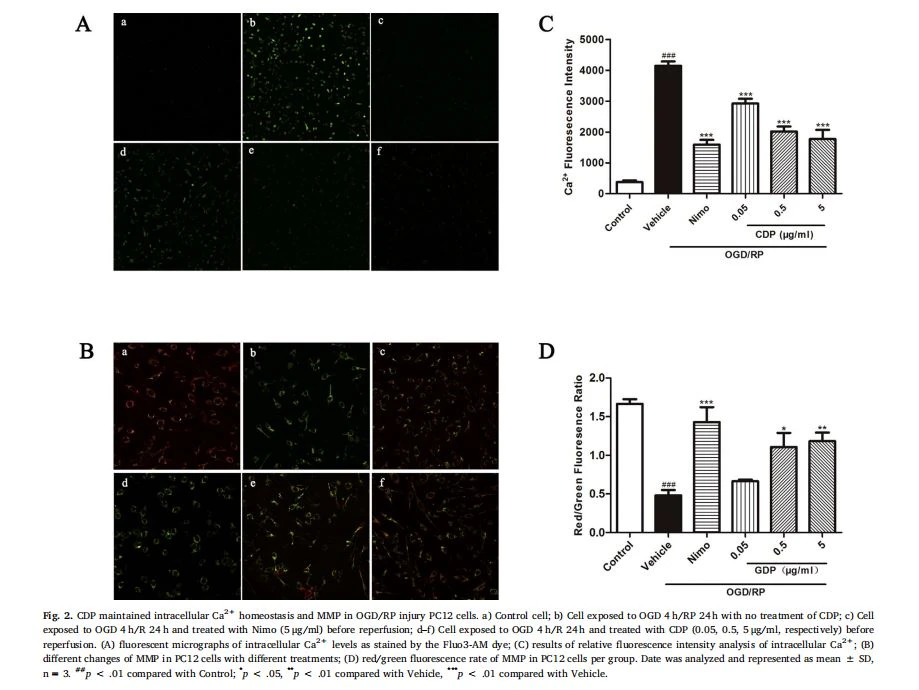
Intracelularni nivoi Ca2 plus u PC12 ćelijama su povećani na 4146,60 ± 195,97 nakon OGD/RP povrede za razliku od kontrolne grupe (373,62 ± 75,69). CDP(Cistanchedeserticolapolisaharidi)grupe ({{0}}.05, 0.5 i 5ug/ml) mogu zavisno od doze sniziti intracelularni nivo Ca2 plus na 2921.25 ± 222.19, 2015.85 ± 230.53 i 1768.43 ± 426.12, respektivno (Sl. ). Štaviše, nivo Ca2 plus u grupi tretiranoj sa 5 ug/ml CDP smanjen je na nivo koji je uporediv sa onim u Nimo grupi (1591,19 ± 213,21).
3.3. CDP(Cistanchedeserticolapolisaharidi)oslabljena OGD/RP-indukovana disipacija MMP
U poređenju sa kontrolnom grupom (1.67 ± 0.89), grupa vozila (0.48 ± 0.10) je pokazala više zelene FL fluorescencije od crvene FL fluorescencija (sl. 2B i D). Odnosi između crvene i zelene fluorescencije FL smanjeni su na 1,11 ± 0,26 i 1,18 ± 0,16 u CDP-u od 0,5 i 5 ug/ml(Cistanchedeserticolapolisaharidi)tretirane grupe respektivno, p < .01.="" fluorescencija="" zelene="" fl="" je="" značajno="">
3.4. CDP(Cistanchedeserticolapolisaharidi)spriječio OGD/RP-indukovanu apoptozu ćelija
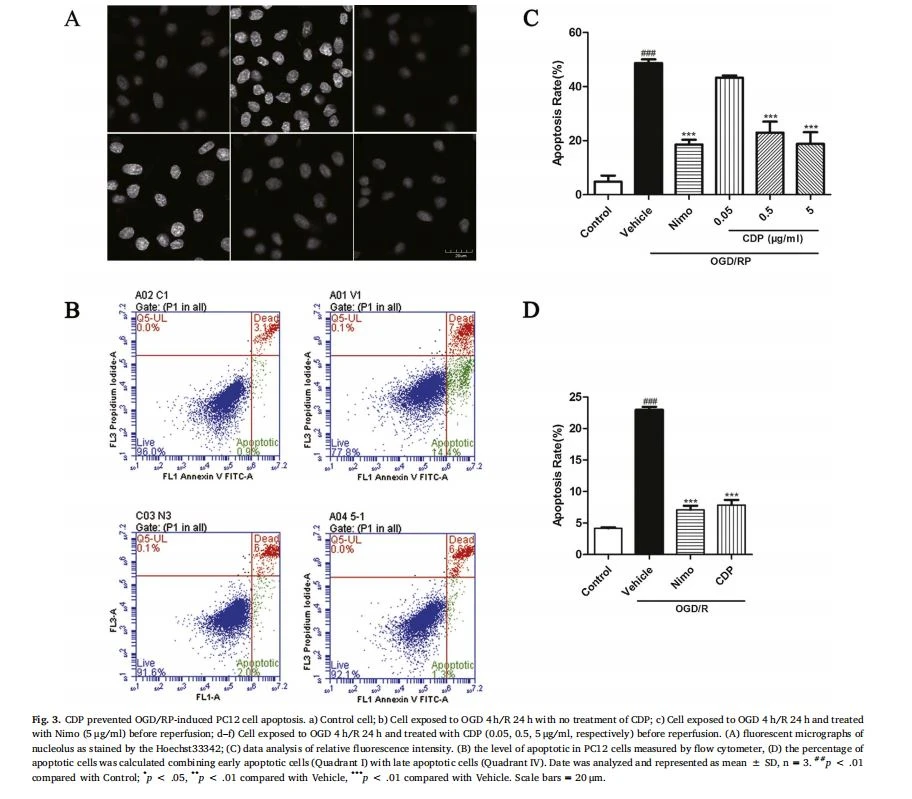
Ćelije koje pokazuju kondenzirane hromatine ili fragmentirana jezgra ocijenjene su kao apoptotičke ćelije [30]. Rezultati analize Hoechst33342 otkrili su pojavu kondenzovanih jezgara nakon OGD/RP (sl. 3A i C). Uočen je visok intenzitet FL fluorescencije u jezgrima u grupi nosača. Intenzitet fluorescencije FL jezgara je oslabljen u CDP od 5 ug/ml(Cistanchedeserticolapolisaharidi)tretirana grupa. Analizirali smo brzinu apoptoze u PC12 ćelijama pomoću druge citometrije koristeći FITC-Annexin V/PI dvostruko bojenje (sl. 3B i D). Kontrolna grupa je imala 4,16 posto ± 0,24 posto apoptotske apoptoze ćelija, dok je grupa sa nosačem imala 22,98 posto ± 0, 66 posto. U grupi koja je tretirana sa 5 ug/ml CDP, stopa apoptoze ćelija bila je 7.86 posto ± 1,16 posto.
3.5. CDP(Cistanchedeserticolapolisaharidi)oslabljena intracelularna akumulacija ROS izazvana OGD/RP i očuvan redoks status
Efekti CDP-a(Cistanchedeserticolapolisaharidi)na oksidativni stres su demonstrirani na osnovu generisanja ROS, GSH-Px, CAT aktivnosti i nivoa T-AOC. Nivoi ROS u OGD/RP-povrijeđenim PC12 ćelijama su se povećali i postali značajno viši od onih u kontrolnoj grupi (p < .01).="" u="" međuvremenu,="" nivoi="" ros-a="" u="">(Cistanchedeserticolapolisaharidi)grupe ({{0}}.05, 0.5 i 5 ug/ml) smanjile su se na način zavisan od doze (p < .01;="" slika="" 4a).="" nadalje,="" cdp="" je="" također="" značajno="" povećao="" nivoe="" t-aoc="" (p="">< .05;="" slika="" 4b),="" cat="" (p="">< .05;="" slika="" 4c)="" i="" gsh-px="" (p="">< .05;="" slika="" 4d)="" u="" poređenju="" sa="" vozilom="" grupa.="" aktivnosti="" endogenih="" antioksidanata="" u="">(Cistanchedeserticolapolisaharidi)grupe su se povećale.

3.6. CDP(Cistanchedeserticolapolisaharidi)stimulisao lučenje DJ-1 i poboljšao izražavanje DJ-1
Otkrivene su promjene koncentracije DJ-1 u ćelijskom supernatantu i otkrivena je moguća veza između DJ-1 i CDP-a(Cistanchedeserticolapolisaharidi). Oslobađanje DJ-1 je uočeno iz OGD/RP-povrijeđenih PC12 ćelija (slika 5). DJ-1 je bio značajno povećan u CDP-u od 5 ug/ml(Cistanchedeserticolapolisaharidi)-tretiranoj grupi (38,66 ± 8,44 pg/ml) i značajno se povećao u odnosu na grupu sa vehikulumom (18,33 ± 3,80 pg/ml, p < ,01) i kontrolnu grupu (9,67 ± 3,96 pg/ml, p < ,01) .
Istražiti efekte CDP-a(Cistanchedeserticolapolisaharidi)o unutarćelijskoj ekspresiji DJ-1, izmjerili smo nivoe DJ-1 proteina Western blottingom. Nivoi ekspresije DJ-1 proteina su značajno povećani 24 sata nakon reperfuzije. Nasuprot tome, post-tretman od 5 ug/ml CDP-a značajno je poboljšao prekomjernu ekspresiju DJ-1 u poređenju sa grupom sa vehikulumom (p < .01,="" slika="">


3.7. CDP(Cistanchedeserticolapolisaharidi)poboljšana DJ-1 translokacija u mitohondrije
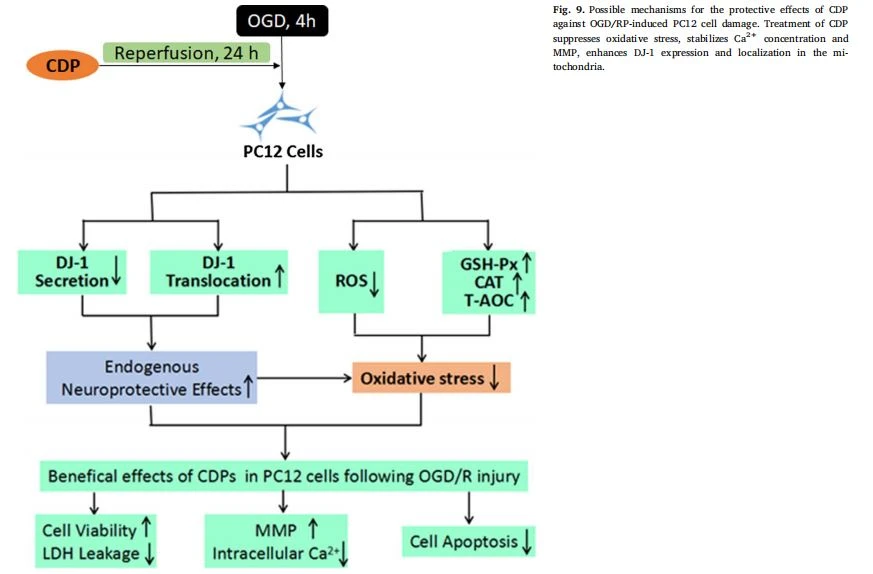
PC12 ćelije su obojene anti-PARK7/DJ-1 i anti-ATP sintaznim antitelima (slike 7 i 8). Anti-ATP sintaza - lanac antitijela povezuje se sa mitohondrijskim kompleksom I, a vezivni antigen je lokaliziran u unutrašnjoj membrani mitohondrija. Rezultati su otkrili da se DJ-1 translocira na unutrašnju membranu mitohondrija nakon OGD/RP inzulta (slika 8). U međuvremenu, rezultati dvostrukog bojenja DJ-1 i mitohondrija su otkrili da je CDP(Cistanchedeserticolapolisaharidi)olakšala DJ- 1 mitohondrijalnu translokaciju i ko-lokalizaciju (slika 8). Ovi rezultati ukazuju na direktnu interakciju između DJ-1 ineuroprotektivniefekat CDP-a(Cistanchedeserticolapolisaharidi)(Sl. 9).


4. Diskusija
U ovoj studiji smo iz prve ruke izvijestili da je CDP(Cistanchedeserticolapolisaharidi)efektivno smanjuje oštećenje PC12 ćelija izazvano OGD/RP-om putem regulacije DJ-1 proteina. CDP(Cistanchedeserticolapolisaharidi)poboljšana vitalnost ćelija, smanjeno oštećenje ćelijske membrane, održavana intracelularna Ca2 plus homeostaza, spriječen gubitak MMP, smanjena apoptoza ćelija, potisnuti oksidativni stres, promovirana ekspresija DJ-1 i poboljšana translokacija DJ-1 u mitohondrije. DJ-1 je nedavno umiješan u regulacijuneuroprotektivniefekat i integritet mitohondrija. Ovi rezultati su pružili uvjerljive dokaze o tomeneuroprotektivniefekti CDP-a(Cistanchedeserticolapolisaharidi)protiv ishemije. Nadalje, interakcija između CDP-a i DJ-1 igra aneuroprotektivniulogu u OGD/RP-induciranom PC12 ćelijama. Gore navedeni rezultati mogu razviti naše razumijevanje blagotvornog učinka CDP-a i mogu pružiti korisne informacije za terapiju moždanog udara u budućnosti.
Ishemijski moždani udar se pripisuje složenoj seriji biohemijskih i molekularnih mehanizama, uključujući ekscitotoksičnost, preopterećenje kalcijem i oksidativni stres [31]. OGD/RP se široko koristi kao in vitro model ishemije-reperfuzije i koristi se za istraživanje neuroloških i biohemijskih promjena. PC12 ćelijska linija je osjetljiva na OGD/RP ozljedu [2]. Pokazuje niz svojstava i karakteristika simpatičkih neurona [32] i na taj način široko korištene neuronske ćelijske linije za istraživanja u vezi s mehanizmima neuroloških oštećenja uslijed moždanog udara [33,34]. Brojne studije su pokazale da oksidativni stres igra vitalnu ulogu u oštećenju moždanog udara i ishemije mozga [35–37]. Protein DJ-1 povezan s Parkinsonovom bolešću može inhibirati ishemijsku neurodegeneraciju i disfunkciju ponašanja smanjenjem neuronske ozljede posredovane ROS-om [7]. Stoga smo koristili OGD/RP-oštećeni PC12 model ćelije da istražimoneuroprotektivniefekat CDP-a(Cistanchedeserticolapolisaharidi).
Stepen povrede PC12 ćelija izazvanih OGD/RP procenjen je testovima oslobađanja MTT, NRU i LDH. Uprava CDP-a(Cistanchedeserticolapolisaharidi)({{0}}.05, 0,5 i 5 ug/ml) poboljšalo preživljavanje ćelija i smanjilo oslobađanje LDH. Povoljni efekti tretmana CDP-om su takođe uključivali smanjenje intracelularnog preopterećenja kalcijumom i očuvanje MMP. Abnormalnosti intracelularne koncentracije Ca2 plus, posebno preopterećenje mitohondrijalnog kalcija, povezane su s neuronskom apoptozom i smrću uzrokovanom ishemijskim moždanim udarom [38]. MMP može odražavati efikasnost lanca transporta elektrona i indiciran je kao indeks patološkog poremećaja ovog sistema [39]. Oba povećanja intracelularne koncentracije Ca2 plus i gubitak MMP mogu dovesti do destabilizacije neuronske strukture i na kraju dovesti do oštećenja ćelije ili smrti ćelije [21,40]. U ovoj studiji, rezultati su pokazali da CDP značajno inhibira intracelularno Ca2 plus preopterećenje i povećava nivoe MMP u PC12 ćelijama oštećenih OGD/RP. Apoptoza igra vitalnu ulogu u kompleksnoj patofiziologiji cerebralne ishemije-reperfuzijske povrede. Sve veći broj podataka ukazuje na to da je apoptoza implicirana u mitohondrijalnu disfunkciju; disipacija MMP je rani događaj koji rezultira apoptozom ćelije [8,39]. Apoptoza je proces programirane smrti ćelije zavisne od energije radi uklanjanja suvišnih ćelija. Mnogi neuroni u ishemijskom moždanom udaru će biti podvrgnuti apoptozi [41]. U ovoj studiji, izvršili smo Hoechst33342 i Annexin V-FITC/PI bojenje da bismo ispitali efekat CDP-a na apoptozu [23,28]. Rezultati su pokazali da CDP održava integritet jezgra i smanjuje stopu apoptoze ćelije. Svi ovi rezultati ukazuju na to da je anti-apoptotička aktivnost CDP-a doprinijela blagotvornom dejstvu u neuronskim povredama u PC12 ćelijama.
Stanice koje prolaze kroz ishemijsko oštećenje uzrokovano prekomjernom akumulacijom ROS, što može dovesti do peroksidacije lipida, oštećenja stanične membrane, preopterećenja kalcijem i disfunkcije mitohondrija, što na kraju rezultira apoptozom i smrću stanice [42]. Konzumacija endogenih antioksidanata, kao što su SOD, CAT i GSH-Px, takođe je ukazala na pojavu. Slika 9. Mogući mehanizmi zaštitnih efekata CDP(Cistanchedeserticolapolisaharidi)protiv oštećenja PC12 ćelija izazvanih OGD/RP. Tretman CDP-a suzbija oksidativni stres, stabilizuje koncentraciju Ca2 plus i MMP, poboljšava ekspresiju DJ-1 i lokalizaciju u mitohondrijama. Y. Liu et al. Biomedicina i farmakoterapija 99 (2018) 671–680 678od oksidativnog stresa tokom ishemije-reperfuzije. U ovoj studiji, OGD/RP grupa je pokazala značajno povećanje ROS-a i smanjenje CAT, GSH-Px i T-AOC u poređenju sa grupom koja je tretirana 5 ug/ml CDP-om. Međutim, primijetili smo značajno smanjenje stopa generiranja ROS-a i potrošnje endogenih antioksidanata (CAT, GSH-Px i T-AOC) u CDP grupama. Pozitivni efekti u grupi sa 5 ug/ml CDP bili su bliski onima u grupi Nimo. Rezultati su pokazali da CDP inhibira stvaranje ROS i obnavlja enzimsku antioksidativnu odbranu.
DJ-1 je ključni redoks-reaktivanneuroprotektivniprotein uključen u regulaciju oksidativnog stresa u moždanom udaru. Blagotvorni efekti prekomjerne ekspresije DJ-1 uključuju preživljavanje ćelija od ishemije-reperfuzije i očuvanje mitohondrijalne funkcije i morfologije, kao što je precipitiranje propusnosti mitohondrija prijelaznog otvaranja pora [39,43]. Prethodne studije su pokazale da je zaštitni efekat DJ-1 u ćelijama izloženim OGD/RP povezan sa njegovim antioksidativnim svojstvima i translokacijom mitohondrija [43–45]. DJ-1 vrši efikasnu endogenu neuroprotekciju u ublažavanju mitohondrijalnih defekata putem translokacije [46]. Nekoliko studija je pokazalo da DJ{10}} translokacija može utjecati na kretanje mitohondrija, poboljšati interakciju između ćelija i promovirati druge procese za opstanak ćelija.
DJ-1 utiče na nekoliko procesa, kao što su migracija i adhezija ćelija, hemotaksija, proliferacija i apoptoza, kako in vitro tako i in vivo modela [6,9,47,48]. Koristeći model moždanog udara oštećenih PC12 ćelija OGD/RP, istražili smo potencijalnu vezu između CDP-a(Cistanchedeserticolapolisaharidi)i DJ-1. Prekomjerna ekspresija DJ- 1 identificirana je ELISA-om i Western blottingom. Uz ovu funkciju, glavni nalaz u eksperimentima pokazao je da se značajna prekomjerna ekspresija DJ-1 dogodila kada je CDP(Cistanchedeserticolapolisaharidi)(5 ug/ml) je primijenjen prije reperfuzije. Ovo je sugeriralo mogućeneuroprotektivniefekat u odnosu CDP-a i DJ-1. Štaviše, primijetili smo da DJ-1 lociran u mitohondrijima u uslovima OGD/RP i obilne ekspresije DJ-1 smanjuje ćelijsku osjetljivost na ROS i inhibira oksidativni stres [45]. Rezultati su implicirali da CDP reguliše i pojačava DJ-1, koji djeluje kao molekularna veza između disfunkcije mitohondrija i oksidativnog stresa i osigurava progresiju sekundarne ćelijske smrti inherentne moždanom udaru [5,47,49–51]. U tandemu sa stabilizacijom DJ-1 u mitohondrijima, CDP(Cistanchedeserticolapolisaharidi)tretman povećava preživljavanje ćelija, stabilizuje Ca2 plus homeostazu, poboljšava disipaciju MMP i sprečava apoptozu povezanu sa mitohondrijama [43]. Sve u svemu, naši rezultati su pokazali da CDP ima novinuneuroprotektivnimehanizam u liječenju ishemijskog moždanog udara.
5. Zaključak
Naši rezultati su pokazali da je CDP(Cistanchedeserticolapolisaharidi)štiti PC12 ćelije od OGD/RP-induciranih ozljeda kroz svoje antioksidativne efekte, koji se djelimično pripisuju DJ-1 posredovanom putu. Ovi efekti uključuju smanjenje stope oštećenja ćelijske membrane, očuvanje homeostaze [Ca2 plus ] I, poboljšanje disipacije MMP, inhibiciju ćelijske apoptoze, slabljenje intracelularnog ROS-a i modulaciju DJ-1 nivoa. Rezultati su također pokazali da interakcije između CDP-a i DJ-1 pojačavaju neuroprotekciju i održavaju integritet mitohondrija. Stoga, ranjivi neuroni mogu biti zaštićeni CDP-om(Cistanchedeserticolapolisaharidi)putem poboljšanja DJ-1 ekspresije tokom ishemijskog moždanog udara.
Priznanja
Ovu studiju podržali su Nacionalna fondacija za prirodne nauke Kine (grant 81360649), Nacionalni program za nauku i tehnologiju (grant 2015BAK45B01) i program podrške nauke i tehnologije autonomne regije Ningxia Hui (grant 2016BZ07).

Cistanche deserticola polisaharidiimati a Neuroprotektivni efekat
Reference
[1] HD Tsai, JS Wu, MH Kao, JJ Chen, GY Sun, WY Ong, TN Lin, Clinacanthus nutans štiti kortikalne neurone od toksičnosti izazvane hipoksijom tako što smanjuje HDAC1/6, Neuromol. Med. 18 (2016) 274–282.
[2] J. Zhao, R. Liu, Moždani udar 1-2-0: program brzog odgovora na moždani udar u Kini, Lancet Neurol. 16 (2017) 27–28.
[3] PM George, GK Steinberg, Nova terapija moždanog udara: otkrivanje patofiziologije moždanog udara i njegov utjecaj na kliničke tretmane, Neuron 87 (2015) 297–309.
[4] H. Yao, T. Ago, T. Kitazono, T. Nabika, Patofiziologija povezana s NADPH oksidazom u eksperimentalnim modelima moždanog udara, Int. J. Mol. Sci. (2017) 18.
[5] J. Cao, M. Ying, N. Xie, G. Lin, R. Dong, J. Zhang, H. Yan, X. Yang, Q. He, B. Yang, Oksidacijska stanja DJ{{ 1}} diktiraju sudbinu ćelije kao odgovor na oksidativni stres izazvan 4-hpr: autofagija ili apoptoza? Antioksid Redox Sign. 21 (2014) 1443–1459.
[6] Y. Kaneko, H. Shojo, J. Burns, M. Staples, N. Tajiri, CV Borlongan, DJ-1 ublažava ishemijsku ćelijsku smrt in vitro, moguće putem mitohondrijalnog puta, Neurobiol, Dis. 62 (2014) 56–61.
[7] D. Yanagisawa, Y. Kitamura, M. Indian, K. Takata, T. Taniguchi, S. Morikawa, M. Morita, T. Inubushi, I. Tooyama, T. Taira, et al., DJ{{ 1}} štiti od neurodegeneracije uzrokovane fokalnom cerebralnom ishemijom i reperfuzijom kod pacova, J. Cereb. Protok krvi. Met. 28 (2008) 563–578.
[8] Y. Kaneko, N. Tajiri, H. Shojo, CV Borlongan, Primarne neuralne ćelije pacova lišene kiseonika i glukoze pokazuju DJ-1 translokaciju u zdrave mitohondrije: moćna terapijska meta za moždani udar, CNS Neurosci. Ther. 20 (2014) 275–281.
[9] N. Tajiri, CV Borlongan, Y. Kaneko, Tretman ciklosporinom A poništava smrt neuronskih ćelija izazvanu ishemijom očuvanjem integriteta mitohondrija kroz povećanje regulacije proteina povezanog sa Parkinsonovom bolešću DJ-1, CNS Neurosci. Ther. 22 (2016) 602–610.
[10] RX Yang, J. Lei, BD Wang, DY Feng, L. Huang, YQ Li, T. Li, G. Zhu, C. Li, FF Lu, et al., Predtretman natrijum fenilbutiratom ublažava cerebralnu ishemiju/ reperfuziona povreda regulacijom DJ-1 proteina, Front. Neurol. 8 (2017) 256.
[11] C. Gu, X. Yang, L. Huang, Cistanches Herba. Neurofarmakološki pregled, Front. Pharmacol. 7 (2016) 289.
[12] Z. Li, H. Lin, L. Gu, J. Gao, CM Tzeng, Herba Cistanche (Rou Cong-Rong): Jedan od najboljih farmaceutskih darova tradicionalne kineske medicine, Front. Pharmacol. 7 (2016) 41.
[13] Q. Liu, J. Li, J. Wang, J. Li, JS Janicki, D. Fan, Efekti i mehanizmi kineske biljne medicine u poboljšanju miokardne ishemije-reperfuzijske povrede, Evid.-Based Compl. Alt. (2013) (2013) 925625.
[14] HS Wong, KM Ko, Herba Cistanches stimulira ćelijski redoks ciklus glutationa pomoću reaktivnih vrsta kisika nastalih mitohondrijalnim disanjem u H9c2 kardiomiocitima, Pharm. Biol. 51 (2013) 64–73.
[15] T. Wang, X. Zhang, W. Xie,Cistanchedeserticola YC Ma, "Desert ginseng": recenzija, Am. J. Chin. Med. 40 (2012) 1123–1141.
[16] L. Gu, WT Xiong, C. Wang, HX Sun, GF Li, X. Liu,Cistanchedeserticoladekocija ublažava toksičnost testisa izazvanu hidroksiureom kod mužjaka miševa, azijski J. Androl. 15 (2013) 838–840.
[17] E. Herzfeld, C. Strauss, S. Simmermacher, K. Bork, R. Horstkorte, F. Dehghani, C. Scheller, Istraživanjeneuroprotektivniuticaj nimodipina na Neuro2a ćelije pomoću modela stresa sličnog operaciji, Int. J. Mol. Sci. 15 (2014) 18453–18465.
[18] G. Vahabzadeh, N. Rahbar-Roshandel, SA Ebrahimi, M. Mahmoudian,Neuroprotektivnoučinak noskapina na cerebralnu ozljedu zbog nedostatka kisika i glukoze, Pharmacol. Rep. 67 (2015) 281–288.
[19] CP Wang, LZ Zhang, GC Li, YW Shi, JL Li, XC Zhang, ZW Wang, F. Ding, XM Liang, Mulberroside A štiti od ishemijskog oštećenja u primarnoj kulturi kortikalnih neurona štakora nakon što je uslijedila deprivacija kisika i glukoze reperfuzijom, J. Neurosci. Res. 92 (2014) 944–954.
[20] X. Qi, R. Zhou, Y. Liu, J. Wang, WN Zhang, HR Tan, Y. Niu, T. Sun, YX Li, JQ Yu, Trans-cinamaldehid zaštićene PC12 ćelije od nedostatka kisika i glukoze /reperfuzijom (OGD/R) izazvana ozljeda putem anti-apoptoze i antioksidativnog stresa, Mol. Cell Biochem. 421 (2016) 67–74.
[21] R. Chang, R. Zhou, X. Qi, J. Wang, F. Wu, W. Yang, W. Zhang, T. Sun, Y. Li, J. Yu, Zaštitni efekti aloina na kisik i Povreda izazvana deprivacijom glukoze u PC12 ćelijama, Brain Res. Bik. 121 (2016) 75–83.
[22] M. Agrawal, V. Kumar, AK Singh, MP Kashyap, VK Khanna, MA Siddiqui, AB Pant, Trans-resveratrol štiti ishemijske PC12 ćelije inhibiranjem faktora transkripcije povezane s hipoksijom i povećanjem nivoa enzima antioksidativne odbrane, ACS Chem. Neurosci. 4 (2013) 285–294.
[23] KW Zeng, LX Liao, MB Zhao, FJ Song, Q. Yu, Y. Jiang, PF Tu, Protosappanin B štiti PC12 stanice od neuronske smrti uzrokovane deprivacijom kisika i glukoze održavanjem mitohondrijalne homeostaze putem indukcije ubikvitin-zavisne p53 razgradnja proteina, Eur. J. Pharmacol. 751 (2015) 13–23.
[24] NT Ma, R. Zhou, RY Chang, YJ Hao, L. Ma, SJ Jin, J. Du, J. Zheng, CJ Zhao, Y. Niu, et al., Zaštitni efekti aloperina na primarne neonatalne štakore kultivisani neuroni hipokampusa povređeni deprivacijom kiseonika i glukoze i reperfuzijom, J. Nat. Med. 69 (2015) 575–583.
[25] Y. Wang, W. Ma, A. Jia, Q. Guo, Parecoxib štiti kortikalne neurone miša od neurotoksičnosti izazvane OGD/R tako što povećava Bcl-2, Neurochem. Res. 40 (2015) 1294–1302.
[26] MP Ponnusamy, P. Seshacharyulu, A. Vaz, P. Dey, SK Batra, MUC4 stabilizira ekspresiju HER2 i održava populaciju matičnih ćelija raka u ćelijama raka jajnika, J. Ovarian Res. 4 (2011) 7.
[27] R. Wang, L. Peng, J. Zhao, L. Zhang, C. Guo, W. Zheng, H. Chen, A. Gardenamid, štiti RGC-5 ćelije od H(2)O( 2)-inducirani oksidativni stres aktiviranjem PI3K/Akt/eNOS signalnog puta, Int. J. Mol. Sci. 16 (2015) 22350–22367.
[28] LP Sun, X. Xu, HH Hwang, X. Wang, KY Su, YL Chen, Diklorometanski ekstrakti propolisa štite ćeliju od oksidativnog stresa izazvanog deprivacijom kisika i glukoze Y. Liu et al. Biomedicina i farmakoterapija 99 (2018) 671–680 679preko smanjenja apoptoze, Food Nutr. Res. 60 (2016) 30081.
[29] L. Wang, Y. Zhang, T. Asakawa, W. Li, S. Han, Q. Li, B. Xiao, H. Namba, C. Lu, Q. Dong,Neuroprotektivnoefekat neuroserpina u astrocitima pacova tretiranim deprivacijom kiseonika i glukoze i reoksigenacijom in vitro, PLoS One. 10 (2015) e0123932.
[30] Z. Zhiwen, W. Haitao, S. Fu, Z. Lihua, JL Peter, Q. Remi, Z. Wenhua, Litijevi joni smanjuju apoptozu izazvanu deprivacijom seruma u PC12 stanicama kroz regulaciju Akt/FoxO1 signalizacije putevi, Psihofarmakologija (Berl) 12 (2015) 625–633.
[31] EJB Dariush Mozaffffarian, S. Alan, et al., Rezime statistike srčanih bolesti i moždanog udara za 2016. godinu. Izvještaj Američkog udruženja za srce, Circulation 133 (2016) 447–454.
[32] JE Jumblatt, TA, Regulacija mjesta vezivanja muskarinskog liganda nervnim faktorom rasta u PC12 ćelijama feohromocitoma, Nature 297 (1982) 152–154.
[33] S. Afrazi, S. Esmaeili-Mahani, V. Sheibani, M. Abbasnejad, Neurosteroid alopregnanolon ublažava apoptozu izazvanu visokom glukozom i sprečava eksperimentalni dijabetički neuropatski bol: in vitro i in vivo studije, J. Steroid Biochem. Mol. Biol. 139 (2014) 98–103.
[34] X. Liu, X. Zhu, M. Chen, Q. Ge, Y. Shen, S. Pan, Resveratrol štiti PC12 ćelije od OGD/R-inducirane apoptoze preko mitohondrijalno posredovanog signalnog puta, Acta Biochem Biophys Sin . 48 (2016) 342–353.
[35] PW Kleikers, K. Wingler, JJ Hermans, I. Diebold, S. Altenhofer, KA Radermacher, B. Janssen, A. Gorlach, HH Schmidt, NADPH oksidaze kao izvor oksidativnog stresa i molekularni cilj u ishemiji/reperfuziji povreda, J. Mol. Med. (Berl) 90 (2012) 1391–1406.
[36] FC Liu, HI Tsai, HP Yu, Efekti zaštite organa ekstrakta crnog vina, resveratrola, kod reperfuzijske ozljede posredovane oksidativnim stresom, Oxid. Med. Cell Longev. (2015) 568634.
[37] LK Seidlmayer, VV Juettner, S. Kettlewell, EV Pavlov, LA Blatter, EN Dedkova, Različiti mehanizmi aktivacije mPTP u ishemiji-reperfuziji: doprinosi Ca2 plus plus, ROS, pH i neorganskog polifosfata, Cardiovasc. Res. 106 (2015) 237–248.
[38] F. Su, AC Guo, WW Li, YL Zhao, ZY Qu, YJ Wang, Q. Wang, YL Zhu, Predkondicioniranje niske doze etanola štiti od nedostatka kisika i glukoze/reoksigenacijom izazvane neuronske ozljede aktiviranjem velike provodljivosti , Ca2 plus plus -aktivirani K plus plus kanali In Vitro, Neurosci. Bik. 33 (2017) 28–40.
[39] Y. Li, M. Wang, S. Wang, Efekat inhibicije mitohondrijalne fisije na energetski metabolizam u neuronima hipokampusa pacova tokom ishemijske/reperfuzijske povrede, Neurol. Res. (2016) 1–8.
[40] C. Rui, L. Yuxiang, H. Yinju, Z. Qingluan, W. Yang, Z. Qipeng, W. Hao, M. Lin, L. Juan, Z. Chengjun, et al., Zaštitni efekti Lycium barbarum polisaharid na primarno kultivisanim neuronima hipokampusa kod novorođenčadi pacova, oštećenih deprivacijom kiseonika i glukoze i reperfuzijom, J. Mol. Histol. 43 (2012) 535–542.
[41] BR Broughton, DC Reutens, CG Sobey, Apoptotički mehanizmi nakon cerebralne ishemije, moždani udar 40 (2009) e331–339.
[42] Jordan M. Willcox, AJS Summerlee, Relaxin štiti astrocite od hipoksije in vitro, PLoS One. 9 (3) (2014) e90864.
[43] X. Zhang, D. Yuan, Q. Sun, L. Xu, E. Lee, AJ Lewis, BS Zuckerbraun, MR Rosengart, Kalcij/kalmodulin zavisna protein kinaza reguliše PINK1/Parkin i DJ{{3} } putevi mitofagije tokom sepse, FASEB J. 31 (2017) 4382–4395.
[44] S. Vasseur, S. Afzal, J. Tardivel-Lacombe, DS Park, JL Iovanna, TW Mak, DJ-1/ PARK7 je važan medijator ćelijskih odgovora izazvanih hipoksijom, Proc. Natl. Akad. Sci. USA 106 (2009) 1111–1116.
[45] Z. Xianghong, Y. Du, S. Qian, X. Li, L. Emma, J. Anthony, Brian Lewis, S. Zuckerbraun, Matthew R. Rosengart, Kalcijum/kalmodulin zavisna protein kinaza reguliše PINK1/ Parkin i DJ{3}} putevi mitofagije tokom sepse, FASEB J. (2017). [
46] MS Choi, T. Nakamura, SJ Cho, X. Han, EA Holland, J. Qu, GA Petsko, JR Yates 3rd, RC Liddington, SA Lipton, Transnitrosilacija od DJ-1 do PTEN smanjuje smrt neuronskih ćelija u modelima Parkinsonove bolesti, J. Neurosci. 34 (2014) 15123–15131.
[47] RK Dongworth, UA Mukherjee, AR Hall, R. Astin, SB Ong, Z. Yao, A. Dyson, G. Szabadkai, SM Davidson, DM Yellon, DJ Hausenloy, DJ-1 štiti od smrti ćelije nakon akutne srčane ishemije-reperfuzijske povrede, Cell Death Dis. 5 (2014) e1082.
[48] A. Di Cello, M. Di Sanzo, FM Perrone, G. Santamaria, E. Rania, E. Angotti, R. Venturella, S. Mancuso, F. Zullo, G. Cuda, F. Costanzo, DJ{ {1}} je pouzdan biomarker u serumu za razlikovanje visokorizičnog karcinoma endometrija, Tumor Biol. 39 (2017) 1010428317705746.
[49] H. Aleyasin, MW Rousseaux, PC Marcogliese, SJ Hewitt, I. Irrcher, AP Joselin, M. Parsanejad, RH Kim, P. Rizzo, SM Callaghan, et al., DJ-1 štiti nigrostrijatalnu ose od neurotoksina MPTP modulacijom AKT puta, Proc. Natl. Akad. Sci. USA 107 (2010) 3186–3191.
[50] RM Canet-Aviles, MA Wilson, DW Miller, R. Ahmad, C. McLendon, S. Bandyopadhyay, MJ Baptista, D. Ringe, GA Petsko, MR Cookson, Protein Parkinsonove bolesti DJ-1 jeneuroprotektivnizbog mitohondrijalne lokalizacije vođene cistein-sulfinskom kiselinom, Proc. Natl. Akad. Sci. USA 101 (2004) 9103–9108.
[51] M. Liu, B. Zhou, ZY Xia, B. Zhao, SQ Lei, QJ Yang, R. Xue, Y. Leng, JJ Xu, Z. Xia, Hiperglikemijom izazvana inhibicija DJ-1 ekspresija je ugrozila efikasnost ishemijske postkondicionirane kardioprotekcije kod pacova, Oxid. Med. Cell Longev. (2013) (2013) 564902.


