

Raznovrsna uloga prokineticina i prokineticinskih receptora u neuroinflamaciji, 2. dio
Jul 01, 2024
3.2. Parkinsonova bolest
Parkinsonova bolest je čest neurodegenerativni poremećaj CNS-a karakteriziran gubitkom dopaminergičkih neurona u substantia nigra pars compacta, što rezultira smanjenjem koncentracije dopamina u striatumu.
Parkinsonova bolest je neurološka bolest koja prvenstveno pogađa motoričke sposobnosti. Međutim, nedavne studije su pokazale da Parkinsonova bolest također može utjecati na pamćenje.
Dok su mnoge studije pokazale da Parkinsonova bolest utiče na pamćenje, ovaj efekat nije nužno negativan. Neki pacijenti su poboljšali pamćenje nakon liječenja Parkinsonove bolesti.
Studije pacijenata sa Parkinsonovom bolešću pokazale su da pacijenti često počinju da doživljavaju blago oštećenje pamćenja u ranim fazama bolesti. Ovo oštećenje se obično manifestuje kao zaboravljanje određenih detalja, a ne kao globalni gubitak pamćenja. Međutim, kako bolest napreduje, stepen oštećenja pamćenja može se povećati.
Ipak, ne treba zanemariti da početak liječenja Parkinsonove bolesti u ranim stadijumima bolesti može pomoći pacijentima da odgode napredovanje bolesti, čime se bolje štiti njihovo pamćenje.
Osim toga, istraživači su također otkrili da motorički trening i kognitivni trening također mogu pomoći pacijentima da poboljšaju svoje pamćenje u liječenju Parkinsonove bolesti. Ovi kursevi obuke mogu pomoći pacijentima da vježbaju različita područja mozga, čime se poboljšava pamćenje i kognitivne funkcije.
Na kraju, važno je naglasiti da iako Parkinsonova bolest može utjecati na pamćenje, to ne znači da će svi pacijenti imati takve posljedice. Mnogi pacijenti i dalje mogu zadržati dobro pamćenje nakon odgovarajućeg liječenja. Sve dok smo pozitivni, Parkinsonova bolest nas neće spriječiti u potrazi za boljim životom. Vidi se da moramo poboljšati pamćenje. Cistanche može značajno poboljšati pamćenje jer ima antioksidativne, protuupalne i anti-age efekte, što može pomoći u smanjenju oksidacije i upalnih reakcija u mozgu, čime se štiti zdravlje nervnog sistema. Osim toga, Cistanche također može promovirati rast i popravak nervnih ćelija, čime se poboljšava povezanost i funkcija neuronskih mreža. Ovi efekti mogu pomoći u poboljšanju pamćenja, sposobnosti učenja i brzine razmišljanja, a također mogu spriječiti pojavu kognitivne disfunkcije i neurodegenerativnih bolesti.

Kliknite Znaj da poboljšate kratkoročno pamćenje
Iako točna etiologija još nije jasna, neuroinflamacija je identificirana kao mogući pokretač patologije. Zaista, brojni naučni podaci pokazuju snažnu mikroglijalnu aktivaciju i proizvodnju citokina kod pacijenata sa PD [45].
Studija provedena na postmortem mozgu pokazala je više razine citokina i pro-apoptotičkih proteina u striatumu i cerebrospinalnoj tekućini (CSF) pacijenata s PD nego kod zdravih osoba [46].
Pretklinička in vivo studija je pokazala da je PK2, koji je fiziološki eksprimiran na vrlo niskim razinama, značajno povećan u striatumu miševa s PD. I u1-metil-4-fenil-1,2,3,6-tetrahidropiridin (MPTP) modelu i MitoPark modelu PD transgenog miša, prekomjerna ekspresija PK2 je već uočena u prva faza neuronske degeneracije prije pojave motoričkih simptoma.
PK2 ispoljava neuroprotektivne funkcije. Vezivanjem za svoje receptore u dopaminergičkim neuronima, PK2 smanjuje smrt neurona izazvanu MPTP-om, oksidativni stres i mitohondrijalnu disfunkciju.
PK2 također promoviše mitohondrijalnu biogenezu regulacijom proliferatora peroksizoma-aktiviranog receptora-gama koaktivatora (PGC-1) i mitohondrijalnog transkripcionog faktora A (TFAM) i aktiviranjem signalnih puteva preživljavanja ERK i AKT.
Štaviše, intrastriatalosko davanje PK2 kod miševa menja biohemijske i bihevioralne deficite izazvane MPTP. Suprotno tome, tretman sa PKR antagonistom PKRA7 pojačava efekte izazvane MPTP.
U istoj studiji, viši nivoi PK2 pronađeni su u postmortembru i serumu pacijenata sa AD u poređenju sa zdravim osobama iste dobi [47]. Povećanje PK2 u serumu korelira sa smanjenjem laktata u CSF, indeksom oksidativnog stresa i mitohondrijalne disfunkcije, što ukazuje na antioksidativnu funkciju PK2.
Istovremeno, povećanje PK2 u serumu korelira sa povećanjem A 1-42 u CSF, što ukazuje na zaštitnu ulogu PK2 na sinaptičkom [48], kao i na nivou neurona-astrocita [25].
Astrociti, koji postaju reaktivni tokom neurotoksičnog stresa, evidentni su u neostrijatumu pacijenata sa PD, kao i na životinjskim modelima PD [49]. Astrociti se mogu transformirati u štetan proinflamatorni fenotip A1 ili koristan protuupalni fenotip A2 [50].
PK2 štiti dopaminergičke neurone u PD, indukujući A2 pomak astrocita i proizvodnju neuroprotektivnih faktora (kao što je Nrf2) i povećavajući unos glutamata [25].
Uzeti zajedno, ovi podaci o neuroprotektivnoj ulozi PK2 uočenoj u PD sugeriraju da agonisti za PKR mogu biti novi potencijalni terapeutici za suzbijanje dopaminergične neuronske smrti koja karakterizira ovu patologiju. Osim toga, strogo regulirani nivo PK2 u serumu kod PD mogao bi se koristiti kao rani biomarker za bolest.
3.3. Multipla skleroza
Multipla skleroza (MS) je autoimuna i neurodegenerativna bolest CNS-a koju karakterizira upala s demijelinizacijom i astroglijalnom proliferacijom (glioza) i glavni je uzrok netraumatskog neurološkog invaliditeta kod mladih odraslih osoba [51].
Proces demijelinizacije pokreće upalni odgovor koji uključuje različite tipove stanica kao što su T limfociti, B stanice, aktivirana mikroglija i makrofagi, dok neurodegeneraciju pokreću različiti procesi, kao što je oksidativni stres koji dovodi do oštećenja tomitohondrija, koje je inducirano ili posredovano upalom [52 ].
Danas postoji konceptualni pomak u razumijevanju MS imunopatologije, udaljavajući se od isključivo T- ili B-ćelija posredovane uloge prema uključivanju drugih tipova stanica. Posebno je dobro opisana uloga mikroglije u procesima popravke i remijelinizacije, što sugerira da bi mikroglija mogla biti potencijalna meta za nove terapije lijekovima [53].
PK2 i njegovi receptori su eksprimirani u CNS-u [15], ćelijama koštane srži i cirkulirajućim leukocitima [14]. PK2 inducira mobilizaciju i diferencijaciju hematopoetskih ćelija [18] i izaziva upalu [24]. Ekspresija PK2 je proučavana kod miševa sa eksperimentalnim autoimunoencefalomijelitisom (EAE), životinjskim modelom MS, i kod pacijenata sa relapsno-remitentnom bolešću MS [14].
Kod EAE miševa, PK2 se pojačano regulira u kičmenoj moždini, u inflamatorno infiltriranim stanicama bijele tvari, kako na mRNA tako i na proteinu. Ovaj PK2 se ne može detektirati samo u CNS-u, već i na periferiji, ćelijama limfnih čvorova (LNC) i serumu EAE miševa.
Takođe, u studijama na ljudima, nivoi PK2 su značajno viši u serumu pacijenata sa relapsno-remitentnim MS nego kod zdravih osoba, a PK2 transkripti su značajno povećane mononuklearne ćelije inperiferne krvi (PBMC) [14].
Budući da su makrofagi glavne komponente inflamatornih infiltrata CNS-a, i kod EAE i kod MS, oni bi mogli biti izvor GCSF-induciranog PK2 [54]. I kod hroničnog EAE i kod relapsirajućih/remitentnih (Proteolipidni protein, PLP) životinjskih modela, preventivni i terapijski tretman antagonistima PKR, PC1 ili PC7, značajno smanjuje težinu bolesti i upalu CNS-a i demijelinizaciju.
Štaviše, tretman antagonistima PKR smanjuje proizvodnju interferona (IFN)-, IL-17 i IL-6, koji su štetni za EAE jer promovišu aktivaciju Th17 i moduliraju autoimuni odgovor protiv mijelinantigena u LNC [ 14]. U skladu sa ovim podacima, isti autori su pokazali da PK2 takođe može pojačati Th1 i Th17 odgovore in vitro, u splenocitima aktiviranim protiv mijelinantigena, i da je ovaj efekat antagonizovan prettretmanom sa PC7.
PK2 promovira aTh1 fenotip povećavajući lučenje IL-1b i IL-12 i smanjujući lučenje IL-10 i IL-4 u makrofagima i splenocitima miša [24].
Nova uloga PK2 u patologiji MS-a dovodi do njegove identifikacije kao važnog potencijalnog cilja za buduću terapijsku primjenu. Cilj je pronaći visoko efikasne i podnošljive lijekove koji su korisni posebno u ranim stadijumima bolesti prije nego što nastupi trajna invalidnost.
3.4. Moždani udar
Krvno-moždana barijera je termin koji se koristi za opisivanje skupa svojstava koje posjeduje vaskulatura CNS-a. BBB reguliše kretanje jona, nutrijenata i ćelija između krvi i CNS-a.
Poremećaj BBB-a okluzijom ili suženjem krvnih žila uzrokovano cerebralnom ishemijom rezultira smanjenom isporukom nutrijenata s jedne strane i povećanim kretanjem vode i proteina plazme u CNS-u, što rezultira stvaranjem edema, s druge strane [55,56].
U ishemijskom jezgru, smanjenje ATP-a zbog nedostatka nutrijenata dovodi do nizvodnih intracelularnih signalnih događaja kao što je brza depolarizacija membrane koja rezultira prekomjernim oslobađanjem glutamata, aktivacijom ekstrasinaptičkih NMDA receptora, abnormalnim priljevom kalcija i stvaranjem reaktivnih vrsta kisika, što na kraju kulminira smrću stanice.
U takvim ozljedama, hipoksija i brzo oslobađanje glutamata aktiviraju različite gene koji proizvode proteine s korisnim djelovanjem, kao što su neurotrofini, i druge sa štetnim efektima, kao što su proinflamatorni citokini.
Ovo dovodi do pogoršanja oštećenja tkiva kroz aktivaciju endotelnih ćelija i makrofaga i regrutovanje T ćelija od strane BBB [57]. Ekspresija mRNA PK2 inducira se u ishemijskom korteksu i striatumu nakon različitih patoloških inzulta, uključujući hipoksiju, reaktivne vrste kisika i ekscitotoksični glutamat.
Ozljeda nakon moždanog udara, indukcija PK2 je dvofazna: 1-3 h nakon ozljede, glutamat inducira početnu prekomjernu ekspresiju PK2, dok se drugi vrhunac opaža nakon 24 h, što je posljedica aktivacije faktora 1 alfa induciranog hipoksijom (HIF1) [58].
Povećanje nivoa PK2, koje pogoduje upali, negativno utiče na patofiziološki odgovor na ishemijski moždani udar. Zaista, primjena antagonista PK2 receptora ili utišavanje pk2 gena sa RNAi dovodi do smanjenja volumena infarkta i blokade centralne upale.
Ova uloga PK2 je nedavno potvrđena u studijama na ljudima koje pokazuju povećanje ekspresije PK2 nakon rupture abdominalne aorte [59].
Međutim, prokinetika može igrati dvostruku ulogu u neurodegeneraciji i neuroprotekciji. Zaista, PK2 također ima zaštitni učinak u apoptotičkim i nekrottičnim modelima cerebralne ishemije, posebno, podstiče razvoj ishemijske tolerancije kroz aktivaciju ERK1/2 i AKT signalizacije [60]. Nedavno je pokazano da PK2 sprječava smrt neuronskih stanica u traumatskim ozljedama mozga putem feroptoze potiskivanjem sinteze supstrata peroksidacije lipida, fosfolipida arahidonske kiseline, degradacije CoA ligaze 4 dugolančane masne kiseline (Acsl4) i inhibicije peroksida lipida [ 61].
4. Kontrola energetskog metabolizma
Promjene PK2 puta određuju promjene u ponašanju hranjenja i osjetljivosti na inzulin koje utječu na energetsku homeostazu. Kallmannov sindrom (KS) mutacije gena PK2 i PKR2 izazivaju promjene hormonske reproduktivne osovine i anosmiju, a mogu biti povezane i s gojaznošću [22].
4.1. Gojaznost
Hipotalamus kontrolira stabilnost tjelesne težine kroz dva različita neuronska kruga: POMC/CART i AgRP/NPY neurone s anoreksigenim i oreksigeničkim djelovanjem, respektivno.
Ravnoteža između ovih neuronskih krugova nadgleda regulaciju unosa hrane i potrošnje energije, a disregulacija dovodi do fenomena gojaznosti. U prehrani bogatoj mastima, višak cirkulirajućih slobodnih masnih kiselina dospijeva u mozak na razini hipotalamusa i izaziva lokalnu upalu povezanu s mikroglijalnom proliferacijom i povećanjem cirkulirajućih citokina.
Ova upala u hipotalamusu vjerovatno uzrokuje sinaptičko remodeliranje i neurodegeneraciju što dovodi do promjena u signalima sitosti. U tom kontekstu, pre-adipociti se diferenciraju i adipociti se povećavaju u veličini, što dovodi do izmijenjene ekspresije adipokina.
Ovo je praćeno imunološkim promjenama kao rezidentni makrofagi, koji imaju antiinflamatornu M2-polarizaciju u mršavom masnom tkivu, prelaze u polarizaciju poput M1-, što dovodi do ekspresije proinflamatornih medijatora i regrutacije cirkulirajući monociti [62]. Prokineticin 2, novi adipokin koji djeluje na G-protein-vezani receptor PKR1, kontrolira unos hrane [14,63].
Anoreksični efekti PK2 zavise od aktivacije neurona Arcuate Nucleus (ARC) koji oslobađaju melanocit-stimulirajući hormon i modulirani su specifičnom fizičkom interakcijom pomoćnog proteina receptora melanokortina 2 (MRAP2) sa PKR1 [64,65].
Nasuprot tome, periferna primjena PK2 pokazuje tendenciju povećanja hranjenja, vjerovatno zbog njegove ograničene sposobnosti da indukuje fosforilaciju STAT3 [66]. PK2 i PKR1 su osjetljivi na nutritivni status: nedostatak hrane za 24 sata se smanjuje, dok unos hrane indukuje njihovu ekspresiju u hipotalamus pacova [67]. Tokom ranog neonatalnog perioda, ekspresija PK2 u hipotalamusu je povećana kod mužjaka i ženki pacova, što je moguće da se kompenzuje nezrelost drugih sistema za regulaciju apetita.
Nivoi serumskog PK2 su značajno povećani kod gojazne djece i kineske populacije s metaboličkim sindromom, a ovo povećanje je u korelaciji s povećanjem indeksa tjelesne mase (BMI) [68,69]. PK1 je potisnut kod metabolički zdravih gojaznih pacijenata koji su podvrgnuti barijatrijskoj operaciji [70].
PK2 također pokazuje anoreksične efekte nakon periferne primjene i sprječava ekspanziju masnog tkiva potiskivanjem proliferacije i diferencijacije preadipocita [14,71,72].
Zaista, miševi s nedostatkom PKR1- pokazuju ubrzanje proliferacije i diferencijacije preadipocita. Ekspanzija masnog tkiva stvara hipoksičnu sredinu koja povezuje i recipročno reguliše angiogenezu i upalu kroz aktivaciju HIF1, regulišući ekspresiju VEGF-a kao i prokineticina [71,73].
Pokazalo se da PK2 promovira upalni fenotip mišjih makrofaga i da smanjuje proizvodnju protuupalnih citokina IL-10 i IL-4 u mišplenocitima [24]. PK2 bi vjerovatno mogao igrati ulogu u pokretanju fenotipskog prebacivanja sa M1 na M2 i održavanju polarizacije M2 kako bi se održala adekvatna funkcija adipocita, ali tačna uloga PK2 u ovom procesu ostaje da se razjasni.
PK2 aktivira PKR1 signalizaciju smanjuje unos hrane [74], što sugerira da selektivni agonisti PKR1 mogu imati terapeutski potencijal za liječenje gojaznosti.
4.2. Dijabetes
Dijabetes tipa 2 (T2D) je uzrokovan gubitkom osjetljivosti na inzulin u adipocitima, mišićima i drugim stanicama zavisnim od inzulina, što dovodi do gubitka učinkovite kontrole koncentracije glukoze, što rezultira upalom i poremećajem metaboličkih puteva.
Jednosloj endotelnih stanica odvaja intersticij od krvi i limfe i određuje dvosmjerni prijenos otopljenih tvari, makromolekula i inzulina preko krvne barijere (BB) u metabolički aktivna tkiva kao što su mišići, masnoće i mozak.
Kod dijabetesa, kronična upala niskog stupnja uzrokovana proinflamatornim citokinima i oksidativnim stresom narušava integritet BB i mijenja difuziju inzulina i hranjivih tvari iz krvi u tkiva, što dovodi do važnih patoloških posljedica dijabetesa kao što su oštećenje srca, neplodnost i komplikacije trudnoće [75 ].
Čvor inzulinskog receptora IRS1 aktivira dva važna signalna puta, ERK i AKT, koji kontrolišu rast i metabolizam ćelije regulacijom unosa i iskorištenja glukoze.
Kod dijabetesa, povećanje inflamatornih citokina dovodi do disregulacije fosforilacije IRS1, što narušava transdukciju inzulinskog signala u korist signalnih puteva ERK dok blokira aktivaciju AKT. Kod ljudi, nivoi PK2 u plazmi su u negativnoj korelaciji sa pacijentima s T2D i čestim S PoNP nukleomorfizmom pk2 gen je povezan sa T2D [76].
PKR1 igra bitnu ulogu u regulaciji endotelnog unosa inzulina i formiranju kapilara. Mišji model sa gubitkom funkcije PKR1 specifičnim za endotel pokazuje smanjeno uzimanje inzulina u endotelnim ćelijama i smanjenu aktivaciju AKT, kao i defektnu ekspresiju i aktivaciju oksidativne sintaze dušika [77].
PKR1 također regulira oslobađanje inzulina preko endotelnih stanica u skeletne mišiće, ograničavajući korak u preuzimanju inglukoze. U skeletnim mišićima, PKR1 je smanjen u uslovima insulinske rezistencije, a fosforilacija AKT je smanjena [78].
Metformin (Met) je široko korišten tretman za T2D jer inducira unos glukoze aktiviranjem AMP kinaze. Primjena Met inducira ekspresiju PK2, PKR1 i PKR2 u kardiomiocitima i testisima, što pruža povoljne efekte protiv oštećenja srca i testisa povezanih sa dijabetesom regulacijom AKT/GSK3 puta.
Ovaj nalaz potvrđuje prethodne podatke koji pokazuju da je PK2 uključen u preživljavanje srčanog mišića i angiogenezu putem AKT i STAT3 puteva [79,80]. Inzulinska rezistencija dovodi do sekundarne hiperinzulinemije, koja je ključna za komplikacije trudnoće kao što su ponovljeni pobačaji i preeklampsija, kao i metaboličke poremećaje kao što je sindrom policističnih jajnika (PCOS).
Insulin preko HIF1 reguliše ekspresiju proangiogenog faktora PK1 u stromalnim ćelijama ljudskog endometrijuma, utičući na njihovu migraciju i posljedično na pravilnu implantaciju embrija. Dihidrotestosteron (DHT), ali ne i testosteron, pojačava efekat insulina u povećanju nivoa PK1 [81]. Dijabetes dovodi do teških neuroinflamatornih komplikacija kao što je neuropatski bol.
U životinjskom modelu dijabetičke neuropatije izazvane streptozotocinom kod miševa, povećana ekspresija PK2 i njegovih receptora PKR1 i PKR2 je demonstrirana u išijadičnom živcu i kičmenoj moždini, a ova prekomjerna ekspresija korelira s razvojem mehaničke alodinije [82].
Tretman PC1 antagonistom normalizuje nivoe prokineticina, obnavlja ravnotežu pro-anti-upalnih citokina i smanjuje perifernu imunološku aktivaciju u kičmenoj moždini i nervima dijabetičkih miševa, čime se blokira i alodinija i upalni događaji koji su u osnovi bolesti [82].
5. Gastro-intestinalna upala
Enterični nervni sistem (ENS), glavni odjel perifernog nervnog sistema, sastoji se od ekstenzivne mreže enteričkih i glijalnih neurona koji regulišu različite procese u gastrointestinalnom traktu, uključujući pokretljivost, lokalni protok krvi, transport i lučenje sluznice. Obuhvata mikrokola primarnih aferentnih neurona koji reaguju na lokalne stimuluse i integrišu informacije koje koordiniraju motorni izlaz.
ENS stoga ima jedinstvena senzorna i motorička svojstva. ENS je izveden iz matičnih ćelija iz neuralnog grebena koje migriraju u i duž primarnog crijeva. Defekti u uspostavljanju ENS-a uzrokuju enterične neuropatije, uključujući Hirschsprungovu bolest (HSCR), koju karakteriše odsustvo ćelija enterikneuralnog grebena (NCC) u distalnom dijelu debelog crijeva.
Sistem za transdukciju signala prokineticina prisutan je u ljudskim ćelijama neuralnog grebena creva i, u interakciji sa neurotrofnim faktorom izvedenim iz glijalnih ćelija (GDNF) i RET signalizacijom, obezbeđuje dodatni nivo signalizacije za održavanje proliferacije i diferencijacije enteričkog NCC [83].
RET (preuređena tokom transfekcije) je transmembranska glikoprotein receptor-tirozin kinaza uključena u razvoj bubrega i enteričkog nervnog sistema tokom embriogeneze.
RET-vezivanje kompleksa GDNF familije liganada sa receptorima porodice GDNF aktivira nekoliko kaskada transdukcije signala uključenih u ćelijsku proliferaciju, uključujući MAPK i STAT3 puteve [84]. pk2 geni, koji su u nekim slučajevima prisutni u kombinaciji sa GDNFor RET mutacijama, pružajući prvi dokaz da ih se smatra genima osjetljivosti na HSCR [23].
Kao što je ranije spomenuto, prokinetici su nazvani zbog svoje sposobnosti da snažno kontrahiraju uzdužne trake glatkih mišića ilealnih zamorčića [5]. Osim toga, oralna primjena PK1 povećava sekreciju crijevne tekućine aktivacijom prostaglandinskih receptora [85]. Ova zapažanja, zajedno sa otkrićem da PK2 može modulirati intestinalni transport jona, povećavaju mogućnost da inhibitori PK2 mogu imati određenu kliničku korist u gastrointestinalnim poremećajima, kao što su sindrom iritabilnog crijeva i inflamatorna bolest crijeva [86].
Ekspresija gena Pk2 je snažno pojačana u uzorcima biopsije pacijenata sa ulceroznim kolitisom (RCU), a slična povećanja su uočena na životinjskim modelima upalnog kolitisa [87,88]. Izloženost majke niskim nivoima kortikosterona tokom laktacije, čini potomstvo (pacovi koje doje CORT) zaštićenim od kolitisa izazvanog 2,4,6-trinitrobenzensulfonskom kiselinom (TNBS) [88].
Ovo smanjenje se može pripisati manjoj aktivaciji NF-κB uključenog u ekspresiju gena Pk2 [88,89]. Povišeni nivoi PK2, kao posljedica upale gastrointestinalnog trakta, također induciraju visceralni bol preko prokineticinskih receptora; zaista, antagonist PKR može preokrenuti inflamatorni visceralni bol [86].
6. Zaključci
Neuroinflamacija je definirana kao upalni odgovor unutar mozga ili kičmene moždine povezan s aktivacijom glije sa značajnom proizvodnjom citokina i hemokina, infiltracijom perifernih imunoloških stanica, edemom, povećanom permeabilnosti i poremećajem krvno-moždane barijere. Ovo oštećenje može dovesti do infiltracije imunoloških ćelija u mozak s posljedičnim pogoršanjem centralne upale.
Neuroinflamacija, koja se viđa kod gojaznosti, dijabetesa, Parkinsonove i Alchajmerove bolesti, uzrokuje nekoliko preklapajućih neurodegenerativnih mehanizama, uključujući oksidativni stres, mitohondrijalnu disfunkciju i upalu [90,91]. Prokineticinski sistem je centralni igrač u neuroinflamaciji 2) (slika 2). mogao bi biti nova terapijska meta za neuroinflamatorne bolesti.
Međutim, budući da je sistem prisutan u različitim tkivima i uključen je u brojne fiziološke procese, upotreba lijeka koji može antagonizirati proinflamatorni učinak prokinetika također može izazvati pojavu nuspojava.
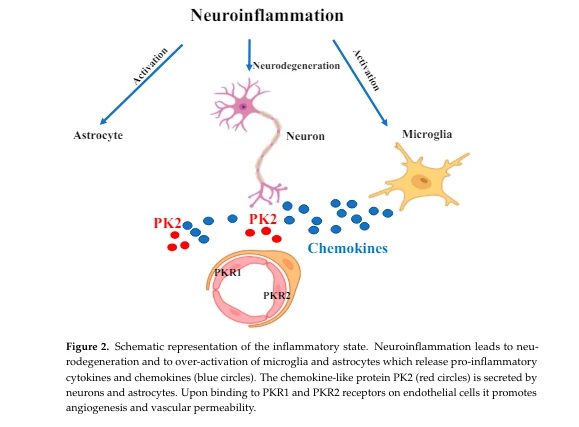
Slika 2. Šematski prikaz upalnog stanja. Neuroinflamacija dovodi do neurodegeneracije i prekomjerne aktivacije mikroglije i astrocita koji oslobađaju proinflamatorne citokine i hemokine (plavi krugovi). Protein PK2 sličan hemokinu (crveni krugovi) luče neuroni i astrociti. Nakon vezivanja za PKR1 i PKR2 receptore na endotelnim ćelijama, potiče angiogenezu i vaskularnu permeabilnost.
Doprinosi autora: RL i RM su podjednako dali doprinos rukopisu. Svi autori su pročitali i pristali na objavljenu verziju rukopisa.

Finansiranje: Ovo istraživanje nije dobilo vanjsko finansiranje.
Izjava institucionalnog odbora za reviziju: Nije primjenjivo.
Izjava o informiranoj saglasnosti: Nije primjenjivo.
Izjava o dostupnosti podataka: Nije primjenjivo.
Sukob interesa: Autori izjavljuju da nema sukoba interesa.
Reference
1. Gonzales, H.; Pacheco, R. T-ćelija posredovana regulacija neuroinflamacije uključene u neurodegenerativne bolesti. J. Neuroinfl.2014, 11, 201.
2. Bagyinszkya, E.; Van Giaua, V.; Shima, K.; Sukb, K.; Ana, SSA; Kim, SY Uloga inflamatornih molekula u napredovanju i dijagnozi Alchajmerove bolesti. J. Neurol. Sci. 2017, 376, 242–254. [CrossRef]
3. Leng, F.; Edison, P. Neuroinflamacija i mikroglijalna aktivacija kod Alchajmerove bolesti: Kuda dalje? Nat. Rev.Neurol. 2021, 17, 157–167. [CrossRef] [PubMed]
4. Sofroniew, MV Astrocitne barijere neurotoksičnoj inflamaciji. Nat. Rev. Neurosci. 2015, 16, 249–263. [CrossRef] [PubMed]
5. Liddelow, SA; Barres, BA Reaktivni astrociti: proizvodnja, funkcija i terapeutski potencijal. Immunity 2017, 46, 957–967.[CrossRef]
6. Kaser, A.; Winklmayr, M.; Lepperdinger, G.; Kreil, G. Porodica proteina AVIT. Izlučeni proteini kičmenjaka bogati cisteinom s različitim funkcijama. EMBO Rep. 2003, 4, 469–473. [CrossRef]
7. Miele, R.; Lattanzi, R.; Bonaccorsi di Patti, MC; Paiardini, A.; Negri, L.; Barra, D. Ekspresija Bv8 u Pichia pastoris za identifikaciju strukturnih karakteristika za vezivanje receptora. Protein Expr. Purif. 2010, 73, 10–14. [CrossRef]
8. Lattanzi, R.; Sacerdote, P.; Franchi, S.; Canestrelli, M.; Miele, R.; Barra, D.; Visentin, S.; DeNuccio, C.; Porreca, F.; De Felice, M.; et al. Farmakološka aktivnost analoga Bv8 je modificirana na poziciji 24. Br. J. Pharmacol. 2012, 166, 950–963. [CrossRef]
9. Marsango, S.; Bonaccorsi di Patti, MC; Barra, D.; Miele, R. Dokaz da prokineticin receptor 2 postoji kao dimer in vivo. Cell.Mol. Life Sci. 2011, 68, 2919–2929. [CrossRef] [PubMed]
10. Sposini, S.; Caltabiano, G.; Hanyaloglu, AC; Miele, R. Identifikacija transmembranskih domena koji regulišu prostorni raspored i aktivnost dimera prokineticin receptora 2. Mol. Cell. Endocrinol. 2015, 399, 362–372. [CrossRef] [PubMed]
11. Désaubry, L.; Kanthasamy, AG; Nebigil, CG Prokineticinska signalizacija u razvojnoj osi srca i mozga: Terapijske mogućnosti za ozljede srca i mozga. Pharm. Res. 2020, 160, 105190. [CrossRef] [PubMed]
12. Chen, J.; Kuei, C.; Sutton, S.; Wilson, S.; Yu, J.; Kamme, F.; Mazur, C.; Lovenberg, T.; Liu, C. Identifikacija i farmakološka karakterizacija prokineticina 2 beta kao selektivnog liganda za prokineticin receptor 1. Mol. Pharmacol. 2005, 67, 2070–2076.[CrossRef] [PubMed]
For more information:1950477648nn@gmail.com


