Razlike u korijenskim izlučevinama Haloxylon Ammodendrona u različitim dobima sastojina i odgovoru klijanja sjemena Cistanche Deserticola
Oct 08, 2026
Abstract
Da razjasnimo kako korijenski eksudatiHaloxylon ammodendron(saksaul) variraju u zavisnosti od starosti sastojina i kakoCistanche deserticola(Cistanche) klijavost sjemena odgovara na ove razlike, istražili smo saksualne sastojine stare 1, 3 i 6 godina u regiji Alar, Xinjiang, Kina. Uzorci korijenskog eksudata su sakupljeni i analizirani korištenjem neciljane metabolomike zasnovane na LC–MS kako bi se okarakterizirale razlike u sastavu. paralelno,Cistanchesjeme je tretirano korijenskim eksudatom iz različitih starosnih grupa i određivana je klijavost sjemena.
Rezultati su pokazali značajne razlike uCistanchestopa klijanja među tretmanima. Tretman eksudatom od 3 godine dao je najveću klijavost, značajno veću od tretiranja eksudatom iz jednogodišnjih i šestogodišnjih sastojina, dok između jednogodišnjih i šestogodišnjih tretmana nije uočena značajna razlika. Metabolomička analiza je pokazala da se ukupni metabolički profili eksudata saksualnog korijena jasno razlikuju u dobi sastojina, a najveći broj diferencijalnih metabolita nastao je između 3-godišnjih i 1-godišnjih sastojina. Diferencijalni metaboliti su uglavnom obogaćeni šećerima, molekulama srodnim vitaminu B6, flavonoidima/fenolima i molekulima povezanim s lipidima. Glavne razlike u putevima uključivale su metabolizam alfa-linolenske kiseline, metabolizam vitamina B6 i puteve vezane za flavonoide. Daljnji skrining integracijom fenotipova klijanja pokazao je da su reprezentativne diferencijalne karakteristike u skladu sa višom klijavošću također koncentrisane u ovim kategorijama metabolita i putevima.
Ovi nalazi ukazuju na jasnu hemijsku diferencijaciju eksudata saksualnog korena između starosti sastojina, i sugerišu da trogodišnje sastojine saksaula mogu razviti hemijsku pozadinu eksudata koja je povoljnija zaCistancheklijavost semena. Rezultati pružaju teorijsku osnovu za razvoj i optimizacijuCistanchetehnike inokulacije.
Ključne riječi: Haloxylon ammodendron; Cistanche deserticola; korijenski eksudati; metabolomika; gradijent starosti

Uvod
Obnova sušnih pustinjskih ekosistema često se oslanja na uspostavljanje i kontinuirano širenje ključnih grmova [1–2].Haloxylon ammodendronje tipična vrsta drveća za fiksiranje pijeska u pustinjskim regijama sjeverozapadne Kine i igra izvanrednu ulogu u vjetrobranima i fiksiranju pijeska, stabilizaciji površine i održavanju strukture vegetacije [3–4]. Oko upravljanja i poboljšanja ekološke funkcije plantaža saksaula postupno se formirao sveobuhvatan put „ekološke obnove – gospodarenja šumama – korištenja resursa” [5–7]. Među ovim pristupima, inokulacijaCistanche deserticolapod plantažama saksaula smatra se reprezentativnim razvojnim modelom koji balansira ekološke i industrijske koristi [8–9].
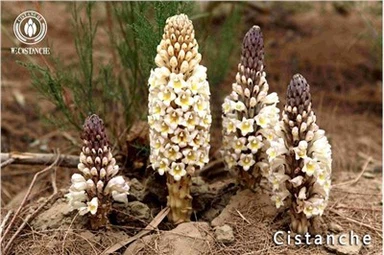
Baza za uzgoj Cistanche u Xinjiangu, Kina

Cistanche deserticolaima značajnu ekonomsku vrijednost i stimulira potražnju za umjetnim uzgojem [10–11]. Međutim, u proizvodnji velikih razmjera, stopa uspješnosti inokulacije parazitima uvelike fluktuira, što utječe na stabilnost i skalabilnost ovog modela [12].
U sistemu saxaul–Cistanche, klijanje sjemena i rano prepoznavanje domaćina su kritični koraci koji određuju da li se može uspostaviti parazitski odnos [12–13].Cistanchesjemenke su izuzetno sitne, a početak klijanja snažno ovisi o stimulaciji iz izlučevina korijena domaćina [14–15]. Nakon klijanja, sadnice moraju u kratkom vremenu locirati korijene domaćina i ući u proces formiranja haustorijuma [16]. Stoga se intenzitet i sastav signala domaćina direktno odražavaju na efikasnost klijanja i kasnije stope uspješnosti parazitiranja [16–17]. Za obavezne parazitske biljke, ovi signali takođe mogu formirati vremensko-prostornu „kombinaciju uslova“ za koju je veća verovatnoća da će izazvati klijanje, tj. takozvani prozor klijanja [18–19].
Eksudati korijena saksaula sadrže više klasa spojeva koji mogu sudjelovati u procesima prepoznavanja i indukcije domaćina, kao što su kinoni, organske kiseline i molekuli povezani s hormonima. Na njihov sastav utječu razvojna faza biljaka i okoliš [20–21]. Prethodne studije sugeriraju da se izlučevine korijena dinamički razlikuju po godišnjim dobima ili fazama rasta, što može dalje dovesti do razlika uCistanchebrzina klijanja, efikasnost formiranja haustorijuma i uspostavljanje parazitizma [22]. Iz perspektive upravljanja plantažama, gradijent starosti sastojine često odgovara razvoju korijenskog sistema domaćina, akumulaciji unosa ugljenika i stabilizaciji mikrookruženja rizosfere. Shodno tome, hemijska pozadina eksudata može biti podvrgnuta sistematskom prilagođavanju [23–26].
Međutim, nedostatni su dokazi o tome kako razlike u starosti preoblikuju kemijski spektar eksudata korijena saksaula i da li takve promjene mogu proizvesti mjerljive reakcije klijanja. Ovaj jaz također ograničava direktne kvantitativne smjernice za odabir starosti domaćina i zakazivanje ključnih perioda upravljanja.
Metabolomika može otkriti promjene u profilima metabolita korijenskog eksudata. Multivarijantne statističke metode kao što su analiza glavnih komponenti (PCA) i ortogonalna parcijalna diskriminantna analiza najmanjih kvadrata (OPLS-DA) mogu se koristiti za razlikovanje grupa i identifikaciju diferencijalnih metabolita [27–28]. Dalje označavanje putanje i analiza obogaćivanja pomaže u tumačenju smjera biohemijskih promjena [29–30]. Sinhronim poređenjem metabolomskih izlaza sa funkcionalnim fenotipovima (npr., stopa klijanja sjemena), kemijske razlike u eksudatu mogu se povezati s mjerljivim ishodima - "da li se klijavost promovira i u kojoj mjeri" - pružajući direktniju podršku za upravljanje i odluke o primjeni [31-33].
Stoga se ova studija fokusirala na sastojine saksaula različite starosti u regiji Alar na rubu pustinje Taklamakan. Prikupili smo korijenske eksudate iz različite starosti sastojine za neciljano profiliranje metabolomike LC–MS i proveliCistanchetestovi klijavosti sjemena koji koriste ove eksudate kao tretmane. Istražili smo promjene u profilima metabolita korijenskog eksudata (ukupno odvajanje, diferencijalni skrining metabolita i obogaćivanje puteva) uzrokovane godinama starenja i uporedili ih s razlikama u brzini klijanja. Studija daje kvantitativne reference za poboljšanjeCistancheuspjeh inokulacije i nudi empirijske metabolomske dokaze za kemijske interakcije između biljaka domaćina i parazitskih biljaka u sušnim regijama.
1 Materijali i metode
1.1 Studijsko područje
Područje istraživanja nalazi se u prelaznoj zoni pustinja-oaza grada Alar, na sjevernom rubu pustinje Taklamakan, Xinjiang, Kina. Region ima tipičnu toplu umjerenu, ekstremno sušnu klimu, sa jakom aktivnošću vjetra i pijeska, oskudnim padavinama i intenzivnim isparavanjem. Srednja godišnja količina padavina iznosi 40,1–82,5 mm, dok je srednja godišnja isparavanja 1876,6–2558,9 mm. Izvori svjetlosti i topline su obilni, a dnevne temperaturne razlike su velike. Površinskom vegetacijom dominira pustinjsko grmlje i rijetko bilje. Saksaul je glavna konstruktivna vrsta koja se koristi za lokalne vjetrozaštitne pojaseve i pojaseve za fiksiranje pijeska, a regija je također važno proizvodno područje za saksaul inokulisaneCistanche.
1.2 Sakupljanje i obrada uzoraka
Uzorkovanje je obavljeno u aprilu 2025. (proljeće) u regiji Alar. Eksudati korijena i sinhroni uzorci tla prikupljeni su iz sastojina saksaula starosti 1, 3 i 6 godina.CistancheEksperimenti klijanja sjemena su provedeni nakon uzorkovanja.
Tretmani od 1, 3 i 6 godina označeni su kao AO, AT i AS, respektivno. Svaki tretman je uključivao tri biološke replike, označene AO1–AO3, AT1–AT3 i AS1–AS3. Jednogodišnji štandovi predstavljaju ranu fazu osnivanja; 3-godišnje sastojine predstavljaju fazu snažnog rasta sa aktivnim procesima rizosfere; i šestogodišnji štandovi predstavljaju relativno stabilnu fazu. Na osnovu razlika u razvojnim fazama domaćina, uporedili smo kemijske varijacije korijenskog eksudata u godinama sastojina i njihov odnos saCistancheklijavost semena.
1.2.1 Sakupljanje korijenskog eksudata
Eksudati korijena su sakupljeni metodom in situ terenske ekstrakcije. Na svakoj plohi saksaula odabrane su jedinke saksaula sa sličnim statusom rasta i bez vidljivih štetočina ili bolesti. Tri biljke su uzorkovane po starosti sastojine kao biološke replike. Korijeni su pažljivo iskopani oko baze biljke, čime su mehaničke ozljede svedene na minimum. Prilijepljeno tlo je nježno uklonjeno; korijenje je isprano dejoniziranom vodom; zatim je korijenje spakovano u vrećice i ponovo zakopano in situ za prethodnu obradu od 24 sata.
Nakon prethodnog tretmana, korijenje je uklonjeno i ponovo lagano isprano dejoniziranom vodom. Segmenti korijena su omotani navlaženim filter papirom da bi se održala vlažnost, stavljeni u epruvete za centrifugiranje od 50 mL, zapečaćeni parafilmom i ponovo zakopani in situ. Nakon 24 h, segmenti korijena umotani u filter papir su sakupljeni, držani na ledu i transportovani u laboratoriju.
U laboratoriju je dodano 100 mL dejonizovane vode, a uzorci su mućkani 30 minuta radi ekstrakcije. Ekstrakt je vakuumski filtriran, koncentriran pod sniženim pritiskom i pohranjen na -80 stepeni za naknadne LC-MS neciljane metabolomičke analize. Isti ekstrakti su takođe korišćeni za testove tretiranja semena.
1.2.2 Uzorkovanje tla i određivanje fizikalno-kemijskih svojstava tla
Uzorci tla uzimani su istovremeno sa eksudatom korijena. Uzorci su prirodno osušeni na zraku, nečistoće su uklonjene i propuštene kroz sito od 2 mm radi fizičko-hemijskih mjerenja uključujući pH, ukupni dušik (TN), ukupni fosfor (TP), ukupni kalij (TK), alkalno hidrolizabilni dušik (AN), raspoloživi fosfor (AP), raspoloživi kalij (AK) i organsku materiju tla (SOM). Detaljne metode su date u tabeli 1.
Tabela 1. Fizičko-hemijski pokazatelji tla i analitičke metode
| Indikator | Skraćenica | Analitička metoda |
|---|---|---|
| pH | - | Potenciometrijska metoda |
| Ukupni dušik | TN | Kjeldahlov metod |
| Ukupni fosfor | TP | NaOH fuzija – kolorimetrija molibdenskog antimona (spektrofotometrija) |
| Ukupni kalijum | TK | Metoda fuzije NaOH |
| Alkalno-hidrolizirani dušik | AN | Metoda alkalne difuzije |
| Dostupan fosfor | AP | Spektrofotometrijska metoda |
| Dostupan kalijum | AK | Metoda ekstrakcije amonijum acetata |
| Organska materija tla | SOM | Metoda oksidacije kalij-dihromata |
1.3 LC–MS neciljana metabolomika i prethodna obrada podataka
Uzorci korijenskog eksudata analizirani su korištenjem tečne hromatografije ultra-visokih performansi – masene spektrometrije visoke rezolucije (UHPLC-HRMS) u pozitivnom i negativnom elektrosprej ionizaciji. Sirovi podaci su podvrgnuti ekstrakciji vrha, korekciji vremena zadržavanja, poravnanju vrha, rukovanju nedostajućim vrijednostima i normalizaciji prije analize nizvodno.
Uzorci kontrole kvaliteta i prazne kontrole korišteni su za uklanjanje pozadinskih smetnji i karakteristika sa slabom ponovljivošću kako bi se poboljšala stabilnost i uporedivost podataka. Identifikacija i označavanje metabolita uglavnom su zasnovani na tačnoj masi, vremenu zadržavanja i obrascima fragmentacije MS/MS, koji su usklađeni sa HMDB, METLIN, MassBank i mapirani na KEGG za analizu putanje. Rezultati napomena su filtrirani prema pouzdanosti podudaranja, a provedena je kategorizacija hemijskih klasa i sumiranje na nivou puta.
1.4 CistancheEksperiment klijanja sjemena
1.4.1 Predtretman sjemena
PrikupljenoCistancheseme je stavljeno na 30 stepeni u inkubator sa konstantnom temperaturom 1 h. Uklonjene su ovojnice sjemena, a sjeme je površinski sterilizirano u 2% natrijum hipohloritu 15 minuta, isprano tri puta sterilnom destilovanom vodom i osušeno na sterilnom filter papiru.
1.4.2 Pre-eksperiment i određivanje bazalnih uvjeta proklijanja
Da bi se osigurala uporedivost između tretmana sa eksudatima iz različitih uzrasta sastojine, sproveden je prethodni eksperiment za skrining uslova dodavanja za giberelin i fluridon. Na osnovu rezultata pre-testiranja, kao bazalni uslov pro-klijanja odabrana je kombinacija sa boljim performansama klijanja i stabilnom ponovljivošću: dodatak 1 mL 1 g·L−1^{-1}−1 giberelina i 1 mL 10 mg·L−1^{-1}−1 fluridona.
1.4.3 Tretmani korijenskim eksudatom iz različite starosti sastojina
Pod objedinjenim bazalnim uslovom proklijanja, jednake količine uzoraka korijenskog eksudata iz 1-, 3- i 6-godišnjih sastojina saksaula dodane su za poređenjeCistanchereakcije klijanja semena. Ova studija se fokusirala na efekte tretmana eksudata iz različitih uzrasta sastojina i nije uključivala gradijent koncentracije eksudata.
Za svaki tretman, 50 prethodno tretiranih sjemenki stavljeno je u Petrijeve posude metodom filter-papira i inkubirano na 25 stepeni u mraku. Klijavost je zabilježena nakon 10 dana. Kao kriterijum klijanja korišćen je radikul (zametna cev) dužine > 1 mm. Svaki tretman imao je tri ponavljanja.
1.5 Statistička analiza
Nakon predprocesiranja i normalizacije, metabolomički podaci su analizirani korištenjem hijerarhijske analize klastera, PCA i OPLS-DA kako bi se procijenile ukupne razlike između starosti sastojina. Diferencijalni metaboliti su testirani pomoću VIP > 1 i P < 0,05. Vennovi dijagrami, dijagrami vulkana, grupisane toplotne mape i analize obogaćivanja KEGG puta korišćeni su za tumačenje glavnih diferencijalnih metaboličkih karakteristika.
Cistanchestope klijavosti sjemena analizirane su jednosmjernom ANOVA; post hoc poređenja su izvršena korištenjem Tukeyovog testa. Nivo značaja je postavljen na =0.05\\alpha=0.05 =0.05.
2 Rezultati i analiza
2.1 Fizičko-hemijske karakteristike tla
Fizičko-hemijski pokazatelji tla pokazali su određene varijacije između različitih starosti sastojine, ali je ukupna veličina promjene bila ograničena (Tablica 2). Tla su na svim parcelama bila alkalna, sa pH vrijednosti od 8,35 do 8,83. Sadržaj ukupnog azota, ukupnog fosfora, ukupnog kalijuma i organske materije je generalno nizak. 3-godišnje tribine su imale relativno više TN, TK, SOM i AK; 6-godišnje tribine su imale nešto veće TP i AP; a jednogodišnje tribine su imale relativno veći AN. Sve u svemu, pozadina tla je donekle fluktuirala u godinama sastojina bez dosljednog trenda smjera. Stoga su se kasnije analize uglavnom fokusirale na razlike između korijena i eksudata i njihovu korespondencijuCistanchereakcije klijanja semena.
Tabela 2. Fizičko-hemijska svojstva tla
| Tretman | pH | TN (g·kg⁻¹) | TP (g·kg⁻¹) | TK (g·kg⁻¹) | AN (mg·kg⁻¹) | AP (mg·kg⁻¹) | AK (mg·kg⁻¹) | SOM (g·kg⁻¹) |
|---|---|---|---|---|---|---|---|---|
| AO | 8.83 | 0.129 | 0.591 | 6.76 | 11.672 | 7.171 | 159.783 | 2.660 |
| AT | 8.35 | 0.165 | 0.604 | 10.69 | 9.114 | 7.381 | 377.900 | 3.186 |
| AS | 8.82 | 0.101 | 0.649 | 7.08 | 10.697 | 8.086 | 185.962 | 2.547 |
napomene:AO=1-godišnji štand; NA=3-godini štand; AS=6- godina stoji.
2.2. Utjecaj korijenskih eksudata iz različite starosti sastojina naCistancheKlijanje sjemena
CistancheStope klijavosti semena su se značajno razlikovale među tretmanima sa korenovim eksudatom iz različitih starosti sastojine (Slika 1). Trogodišnji tretman eksudatom sastojine (AT) dao je najveću stopu klijanja od 84,66% ± 1,15%. Jednogodišnji (AO) i 6-godišnji (AS) tretmani dali su 80,89% ± 2,04% i 80,67% ± 0,67%, respektivno. Jednosmjerna ANOVA je pokazala značajnu razliku između tretmana (P=0.022). Tukeyjev post hoc test je pokazao da je AT značajno veći od AO (P=0.038) i AS (P=0.030), dok se AO i AS nisu značajno razlikovali (P=0.980).

Fig. 1 Razlike u klijavosti sjemena Cistanche deserticola pod tretmanima eksudatom korijena sa sastojina Haloxylon ammodendrona različite starosti
Ovi rezultati upućuju na to da tokom proljetnog perioda, korijenski eksudati iz različite starosti sastojine odgovaraju jasnim razlikama uCistanchereakcije klijanja sjemena i izlučevine iz trogodišnjih sastojina pokazuju jači potencijal za podsticanje klijanja. Da bismo dalje objasnili ove razlike, analizirali smo sveukupno odvajanje profila metabolita i diferencijalne metaboličke karakteristike.
2.3 Ukupne razlike u korijenskim eksudatima u godinama sastojina
2.3.1. Sveukupno razdvajanje metaboličkih profila korijen-eksudat
Metabolički profili korijenskih eksudata bili su jasno diferencirani u zavisnosti od starosti sastojina. Globalna toplotna karta (Slika 2) pokazala je da je većina uzoraka u istoj starosti sastojine grupirana na istoj grani, što ukazuje na dobru konzistentnost unutar grupe. Uzorci iz različite starosti sastojine pokazali su relativno jasne obrasce grupisanja, što sugerira da je sastav eksudata reorganiziran s godinama sastojine.
Rezultati PCA (Slika 3) pokazuju da prve dvije glavne komponente objašnjavaju 46,5% ukupne varijanse; PC1 i PC2 su objasnili 32,1% i 14,4%, respektivno. Uzorci različitih uzrasta sastojina pokazali su različite distribucije u prostoru ordinacije. Konkretno, jednogodišnji uzorci pokazali su ukupni trend distribucije različit od 3- i 6-godišnjih uzoraka, što ukazuje na strukturnu diferencijaciju u ukupnom sastavu eksudata sa starošću sastojine. Iako je ostala varijabilnost unutar grupe, trend razdvajanja u vezi sa stajnom bio je jasan.

2.3.2 Diskriminacija između grupa
Da bi se dalje uporedile razlike između sastojina, poređenja u paru (AO vs. AT, AO vs. AS, AT vs. AS) su provedena na osnovu podataka negativnog jonskog moda (Slika 4). Sva tri poređenja su pokazala jasno razdvajanje i dobro grupisanje bioloških replika, pokazujući stabilne metaboličke razlike između starosti sastojina.
Svi OPLS-DA modeli su pokazali dobro uklapanje i prediktivne performanse, sa R2Y=0.998–1.000 i Q2=0.663–0.873, što ukazuje na robusnu diskriminaciju uzoraka korijenskog eksudata između starosti sastojina. Razdvajanje je bilo najizraženije između AS i AO, što ukazuje na najveću ukupnu kompozicionu razliku između 1- i 6-godišnjih eksudata sastojine. AT je također pokazao stabilno odvajanje od AO i AS, što ukazuje da trogodišnji eksudati već posjeduju različite karakteristike specifične za stadijum. Sveukupno, profili metabolita korijena eksudata bili su vrlo diskriminacijski u svim uzrastima, podržavajući nizvodne analize diferencijalnih metabolita i njihovu povezanost s razlikama u klijanju.

Fig. 3 Analiza glavne komponente

Fig. 4 Poređenje u paru OPLS-DA rezultata korijenskih eksudata iz Haloxylon ammodendrona različite starosti
2.4 Glavne diferencijalne metaboličke karakteristike eksudata korijena saksaula
2.4.1 Broj diferencijalnih metabolita i zajedničkih karakteristika
Svako poređenje u paru između starosti sastojine sadržavalo je određeni broj diferencijalnih metabolita (Slika 5). Najveći broj se dogodio u AT naspram AO, sa 31 diferencijalnim metabolitom. AS naspram AO i AS naspram AT imale su 24 odnosno 18 diferencijalnih metabolita, što ukazuje da su razlike između trogodišnjeg i jednogodišnjeg eksudata bile najizraženije.
Sedam diferencijalnih metabolita je podijeljeno u sva tri poređenja, što ukazuje na relativno stabilan skup metabolita koji reaguju na promjene starosne dobi. U međuvremenu, svako poređenje zadržalo je neke jedinstvene diferencijalne metabolite, odražavajući jasne karakteristike specifične za stadij u promjenama eksudata. Sve u svemu, razlike u starosti su izražene ne samo u broju metabolita, već iu strukturi u kojoj su koegzistirali zajednički i specifični diferencijalni metaboliti.

Fig. 5 Venov dijagram diferencijalnih metabolita u korijenskim eksudatima Haloxylon ammodendrona u godinama sastojine
2.4.2 Obrasci promjene u diferencijalnim metabolitima
Vulkanski dijagrami i grupisane toplotne karte ukazivale su na modularne obrasce promjene korijenskih eksudata u godinama sastojina. U sva tri poređenja (Slika 6), značajni metaboliti su raspoređeni na obje strane vulkanskih ploha, što ukazuje na gore i dole regulirane metabolite između sastojina. Mnoge značajne karakteristike pokazale su velike promjene i jak značaj, što sugerira da je razdvajanje grupa zajedno vođeno skupom koncentriranih metaboličkih pomaka, a ne raštrkanim pojedinačnim varijacijama.
Na osnovu napomena o metabolitima, glavne diferencijalne kategorije koncentrisane su na šećere, molekule povezane s vitaminom B6, flavonoide/fenole i molekule povezane s lipidima. Reprezentativni diferencijalni metaboliti uključivali su saharozu, izopiridoksal, linolenat (18:3), PA 40:7, metil giberelin A9 i sekologanin.
AT u odnosu na AO sadržavao je najveći broj diferencijalnih metabolita, što ukazuje na jači pomak hemijskog učinka sa jednogodišnjeg na 3-godišnje zadržavanje. Razlike između AT i AS su također bile stabilne, što ukazuje da 3-godišnja faza nije samo linearna tranzicija između 1-godišnjeg i 6-godišnjeg stadija, već ima jasne karakteristike specifične za etapu. Sve u svemu, razlike između sastojina uglavnom su odražavale koordinirane promjene između gore navedenih kategorija metabolita, a ne izolirane fluktuacije u pojedinačnim metabolitima.

Fig. 6 Vulkanski dijagrami diferencijalnih metabolita u korijenskim eksudatima Haloxylon ammodendrona u godinama sastojine
Toplotna mapa reprezentativnih diferencijalnih metabolita (Slika 7) je dalje pokazala dobro grupisanje bioloških replika i jasno razdvajanje između starosti sastojina, što ukazuje da se razlike u starosti sastojine direktno odražavaju u profilima diferencijalnih metabolita. Grupa od 3 godine (AT) pokazala je delimičnu sličnost sa AO ili AS u različitim metabolitskim modulima, ali je zadržala svoje posebne karakteristike. Neki metaboliti su dostigli vrhunac u AT dok su ostali niži u AO i AS; drugi su bili niži u AT, ali viši u AO ili AS. Dakle, trogodišnja faza nije pratila jednostavan monotoni obrazac povećanja/spadanja, već jasnu reorganizaciju specifičnu za etapu. Posebno, molekule povezane s vitaminom B6 (npr. izopiridoksal, piridoksat), flavonoidi/fenoli (npr. kvercetin, izokvercitrin, skopolin) i molekule povezane s lipidima (npr. linolenat 18:3, PA 40:7, modularni uzorak; FAO28) u skladu sa analizama diskriminacije.

Fig. 7 Hijerarhijska klasterska toplotna mapa reprezentativnih diferencijalnih metabolita
2.4.3 Glavni uključeni metabolički putevi
Analiza KEGG puta je pokazala da razlike u eksudatu korijena saksaula povezane sa starenjem su prvenstveno uključivale metabolizam lipida, metabolizam vitamina/kofaktora i sekundarni metabolizam vezan za flavonoide (Slika 8). Metabolizam alfa-linolenske kiseline pojavio se s relativno visokim faktorom utjecaja na put, koji predstavlja istaknuti put vezan za lipide pod razlikama u godinama. Metabolizam vitamina B6 također je pokazao veliki značaj, što ukazuje na značajne promjene u malim molekulima povezanim s kofaktorima i redoks homeostazom.
U sekundarnom metabolizmu, biosinteza flavonoida, biosinteza flavona i flavonola i degradacija flavonoida su obogaćeni, što ukazuje da je fenolno-flavonoidni modul glavni pravac varijacije starosne dobi. Dodatno, putevi aromatičnih spojeva kao što je degradacija benzoata pokazali su određene odgovore. Sve u svemu, razlike u eksudatu korijena saksaula uzrokovane starenjem su uglavnom strukturirane oko metabolizma lipida, metabolizma vitamina B6 i sekundarnog metabolizma flavonoida/fenola.
2.5 Reprezentativni diferencijalni metaboliti pregledani na osnovu fenotipova klijanja
Da bi se dalje razjasnile veze između razlika eksudata iCistanchefenotipovi klijanja, diferencijalni metaboliti su integrisani sa obrascima brzine klijanja. Testovi klijanja su pokazali da je AT tretman imao najveću stopu klijanja, dok su AO i AS bili niži i nisu se značajno razlikovali. Ovaj obrazac sugerira da trogodišnji eksudati saksaula mogu sadržavati kemijske komponente koje su povoljnije za promicanjeCistancheklijavost semena.
Na osnovu ovog fenotipa, dali smo prioritet metabolitima koji su se (i) pojavili i u AT naspram AO i AT naspram AS poređenjima i (ii) pokazali trendove promjene u skladu s većom klijavošću (Tabela 3). Ove diferencijalne karakteristike kandidata uglavnom su bile koncentrisane u šećerima, molekulima povezanim s lipidima, molekulima povezanim s vitaminom B6 i flavonoidima/fenolima, a povezane su s metabolizmom alfa-linolenske kiseline, metabolizmom vitamina B6 i putevima povezanim s flavonoidima. Ovi rezultati ukazuju na jasno grupisanje kategorija među metaboličkim karakteristikama kandidata u skladu sa većom klijavošću, sugerirajući da ovi metaboliti ili srodni putevi mogu doprinijeti fenotipu klijanja.

Fig. 8 Bubble dijagram faktora koji utiču na metabolički put
Tab. 3 Podudarnost između diferencijalnih karakteristika korijenskih eksudata iz sastojina Haloxylon ammodendrona različite starosti i klijanja sjemena Cistanche deserticola
| Grupa za poređenje | Vrsta reakcije klijanja | Glavne diferencijalne kategorije | Karakteristike razlike | Reprezentativni diferencijalni metaboliti |
|---|---|---|---|---|
| AT vs AO | Stopa klijanja uAT višinegoAO | Šećeri, povezani sa vitaminom B6, flavonoidi/fenolne kiseline, lipidi | Značajna modularna reorganizacijau eksudatu na3 godinestand age | saharoza; izopiridoksal; piridoksat; kvercetin; Isoquercitrin; linolenat (18:3) |
| AS vs AT | Stopa klijanja uAS niženegoAT | Šećeri, flavonoidi, giberelini | Razlikovanje između6 godinai3 godinestoji kodsignalizacijaisekundarni metabolizamnivoa | saharoza; Isoquercitrin; Metil giberelin A9 |
| AS protiv AO | Razlika u stopi klijanjanije značajno | Srodni vitaminu B6, lipidi | Velike metaboličke razlikeizmeđu1 godinai6 godinastoji, alinema značajne razlike u klijavosti | izopiridoksal itd. |
3 Diskusija
3.1 Starost stajanja pokreće hemijsku diferencijaciju eksudata korijena saksaula
Eksudati korijena biljaka nisu statični; oni se dinamički prilagođavaju razvojnoj fazi, alokaciji resursa i promjenama okoliša rizosfere. McLaughlin et al. [22] su pokazali da eksudati korijena značajno variraju među biljnim vrstama i vremenskim razmjerima, što ukazuje na snažnu prostorno-vremensku dinamiku. Chen et al. [23] dalje su izvijestili da i starost stabla i godišnje doba značajno mijenjaju strategije izlučivanja korijena i sastav metabolita u plantažama kineske jele, pokazujući jasne razlike u dobnim fazama u metaboličkim rezultatima. Ove studije podržavaju fiziološko-ekološku osnovu za diferencijaciju hemije korijenskog eksudata vođenu razvojnim stadijima.
U ovoj studiji, eksudati korijena saksaula pokazali su jasnu diferencijaciju između starosti sastojina na ukupnom nivou metabolita. Grupisanje toplotnih mapa, PCA i OPLS-DA su pokazali stabilno razdvajanje između starosti sastojina, što ukazuje da starost sastojina može dovesti do hemijske reorganizacije eksudata korena saksaula specifične za stadijum. Ovo se slaže sa postojećim saznanjima da faza rasta biljaka utiče na sastav eksudata, i sugeriše da u sistemu domaćina saksaul–Cistanche, varijacija starosti može biti važan ekološki faktor koji oblikuje pozadinu signala koji potiču iz korena.
Štaviše, promene u starosti korespondiraju ne samo sa razvojnom fazom domaćina, već i sa promenama u pozadini životne sredine rizosfere. Nivoi hranljivih sastojaka u tlu, pH, organske materije i salinitet mogu uticati na usvajanje hranljivih materija u biljci, obrasce alokacije ugljenika i stabilnost rizosfere, čime se dalje reguliše sastav i procesi oslobađanja korenovih eksudata.
3.2 Eksudati iz 3-godišnjeg saksaula odgovaraju višemCistancheStope klijavosti sjemena
Klijanje sjemena parazitskih biljaka u velikoj mjeri ovisi o kemijskim signalima dobivenim od domaćina. Nelson [16] je primijetio da se biljke parazitske na korijenu kod Orobanchaceae obično oslanjaju na signalne molekule koje su otpuštene iz korijena domaćina kako bi otkrile prisustvo domaćina i pokrenule klijanje; takvo "klijanje izazvano domaćinom" je ključni adaptivni mehanizam.
U ovoj studiji,CistancheKlijavost sjemena bila je najveća pod 3-godišnjim tretmanom eksudatom saksaula, značajno viša u odnosu na tretmane sa 1-godišnjim i 6-godišnjim eksudatom, dok nije uočena značajna razlika između 1-godišnjeg i 6-godišnjeg tretmana. Ovo ukazuje da različiti domaćini u starosnoj dobi vjerovatno daju ne samo različite količine eksudata, već i kemijski različitu pozadinu koja potiče klijanje. Činjenica da su AT u odnosu na AO imali najviše diferenciranih metabolita sugerira da je hemijska reorganizacija sa jednogodišnjih na 3-godišnje sastojine bila najveća, u skladu sa smjerom veće klijavosti.
Ovaj obrazac se može odnositi na razlike u fazi rasta u saksaulu i odgovarajućim strategijama alokacije resursa. Jednogodišnji saksaul je u ranoj fazi uspostavljanja, gdje biljke nisu u potpunosti stabilizirane, korijenski sistemi i nabavka resursa su relativno ograničeni, a metabolički rezultati mogu biti više fokusirani na održavanje samorasta. Šestogodišnji saksaul je u relativno zreloj fazi, gdje se alokacija resursa može pomaknuti prema održavanju, strukturnoj stabilnosti i prilagođavanju okoliša, što dovodi do stabilnijih strategija eksudacije. Nasuprot tome, trogodišnji saksaul je općenito u fazi snažnog rasta, s aktivnijim širenjem korijena, unosom hranjivih tvari i podzemnim metabolizmom, što ga čini vjerojatnijim da formira bogatiji i promjenjiviji profil korijenskog eksudata. Na osnovu toga, izražena reorganizacija metabolita i veća stopa klijanja u 3-godišnjem tretmanu mogu odražavati povoljnije okruženje signala rizosfere za iniciranjeCistancheklijavost semena tokom prolećnog perioda.
3.3 Glavne diferencijalne metaboličke karakteristike u skladu sa odgovorima klijanja
Metabolomika efikasno otkriva promene u profilu metabolita u složenim uzorcima. Kada se integriše sa analizom obogaćivanja puteva, omogućava identifikaciju glavnih pravaca promena na nivou sistema. Prethodne studije [31–33] sugeriraju da kombiniranje rezultata metabolomike s funkcionalnim fenotipovima kao što je klijanje sjemena pomaže u ciljanju metabolita kandidata ili puteva koji su u skladu s fenotipskim promjenama. Za korijenske eksudate, strategija "prvo fenotip, praćenje metabolita" posebno je korisna za identifikaciju metaboličkih karakteristika kandidata povezanih sa specifičnim biološkim efektima.
U ovoj studiji, skrining vođen fenotipom je pokazao da su reprezentativne diferencijalne karakteristike koje su u skladu s višom stopom klijanja u trogodišnjem tretmanu uglavnom koncentrisane na šećere, molekule srodne vitaminu B6, flavonoide/fenole i molekule povezane s lipidima, uključujući metabolizam alfa-linolenske kiseline i metabolizam flavoida vitamina B6. Mehanički, šećeri mogu odražavati promjene u opskrbi i raspodjeli ugljika u rizosferi; molekule povezane s lipidima mogu se odnositi na remodeliranje lipida u membrani i regulaciju signala stresa; flavonoidi/fenoli mogu učestvovati u prepoznavanju domaćin-parazit i prijenosu signala rizosfere; i molekule povezane s vitaminom B6 mogu biti povezane s metaboličkom homeostazom i puferiranjem stresa. Ove metaboličke kategorije su pokazale koordinisane promjene u AT grupi.
CistancheIstraživanja u vezi s tim pokazuju da fenolne kiseline dobivene iz domaćina mogu utjecati na indukcijske procese, a fenolni/aromatični sekundarni metaboliti u korijenu domaćina mogu igrati ulogu u parazitskim odgovorima [14]. Iako ova studija ne može direktno dokazati da je jedan metabolit odlučujući faktor koji pokreće poboljšanu klijavost, promjene grupisane po kategorijama uočene u trogodišnjoj grupi sugeriraju da prednost koja potiče klijanje vjerojatnije proizlazi iz koordinirane reorganizacije višestrukih metabolita koji formiraju složenu kemijsku pozadinu, a ne slučajnog povećanja jedne molekule.
3.4 Praktične implikacije i ograničenja studije
Iz perspektive proizvodnje i prakse, rezultati sugeriraju da tokom proljetnog perioda, trogodišnji saksaul može imati bolji potencijal zaCistancheinokulacija, pružajući referencu za odabir starosti domaćina u podšumamaCistancheuzgoj i mogući pravci tehničkog razvoja za poboljšanje uspjeha inokulacije.
Međutim, ova studija se zasniva na jednom uzorkovanju proleća, a zaključci uglavnom odražavaju odnose tokom prolećnog prozora; direktna ekstrapolacija na cijelu godinu još nije podržana. Osim toga, uloga pozadine tla u oblikovanju karakteristika metabolita eksudata ostaje u velikoj mjeri inferencijalna i treba je dalje potvrđivati korelacijskim analizama, kontroliranim eksperimentima ili multi-omskim pristupima. Neciljana metabolomika također ima ograničenja kao što su interferencija izomera i ograničena pouzdanost identifikacije za neke metabolite. Stoga, molekule vezane za lipide, vitamin B6 i flavonoide/fenolne molekule treba smatrati kandidatima, a ne potpuno potvrđenim ključnim faktorima indukcije. Konačno, na praktične ishode inokulacije utiču višestruki faktori uključujući uspostavljanje parazita, formiranje haustorijuma, kasniji rast, terenske uslove vode i soli i prakse upravljanja. Neophodan je dalji rad koji kombinuje terenska ispitivanja inokulacije, istraživanja utvrđivanja parazitizma i ciljanu validaciju ključnih metabolita kandidata da bi se ojačao prevođenje u proizvodnju u stvarnom svetu.
4 Zaključci
Hemijska reorganizacija sastava eksudata korijena saksaula u različitim godinama sastojina jasno je korespondirala s razlikama uCistanchereakcije klijanja sjemena, naglašavajući važnost razvojne faze domaćina u regulaciji fenotipova klijanja sjemena parazita. U travnju su se metabolički profili korijenskog eksudata značajno razlikovali između starosti sastojina. Trogodišnji eksudat saksaula pokazao je najizraženije razlike i odgovarao najvećojCistanchebrzina klijanja semena. Reprezentativne diferencijalne karakteristike koje su u skladu s većom klijavošću bile su uglavnom koncentrisane u šećerima, molekulama srodnim vitaminu B6, flavonoidima/fenolima i molekulima povezanim s lipidima, uključujući metabolizam alfa-linolenske kiseline, metabolizam vitamina B6 i puteve vezane za flavonoide. Odnos stajanje–eksudat–klijanje nije pratio jednostavno linearno poboljšanje; srednja dob sastojine je vjerojatnije formirala hemijsku pozadinu u skladu sa većom reakcijom klijanja.
Prilozi autora
Zhao Zhen: konceptualizacija, metodologija, istraživanje, prikupljanje podataka, analiza podataka, izrada, vizualizacija.
Fan Jinglong: metodologija, pregled i uređivanje, vizualizacija, nadzor, administracija projekta, pribavljanje sredstava.
Dong Weikang: istraživanje, prikupljanje podataka.
Zhou Zhibin: resursi, nadzor, stjecanje sredstava.
Li Bingwen, Wang Shijie: metodologija, resursi, nadzor, pribavljanje sredstava.