Uvid u sezamolin: fizikalno-hemijska svojstva, farmakološke aktivnosti i budući istraživački izgledi
Mar 25, 2022
Kontakt: Audrey Hu Whatsapp/hp: 0086 13880143964 Email:audrey.hu@wecistanche.com
Reny Rosalina 1 i Natthida Weerapreeyakul 2,3,*
1 Graduate School (Biomedical Sciences Program), Faculty of Pharmaceutical Sciences, Khon Kaen University, Khon Kaen 40002, Thailand; renyrosalina@kkumail.com
2 Odsjek za farmaceutsku hemiju, Fakultet farmaceutskih nauka, Univerzitet Khon Kaen, Khon Kaen 40002, Tajland
3 Institut za istraživanje visokih performansi i promocije zdravlja, Univerzitet Khon Kaen, Khon Kaen 40002, Tajland
Abstract
Sjemenke susama bogate su sadržajem lignana i dobro su poznate po svojim zdravstvenim prednostima. Za razliku od drugih susamovih lignana (tj. sezamina i sezamola), proučavanje farmakološke aktivnosti sezamolina nije široko istraženo. Ovaj pregled, dakle, sumira informacije vezane za farmakološke aktivnosti sezamolina i mehanizam djelovanja. Nadalje, razmatra se i utjecaj njegovih fizičko-hemijskih svojstava na farmakološku aktivnost. Sesamolin je imao neuroprotektivnu aktivnost protiv reaktivnih vrsta kiseonika izazvanih hipoksijom (ROS) i oksidativnog stresa u neuronskim ćelijama smanjujući ROS i inhibirajući apoptozu. Kod raka kože, sezamolin je pokazao antimelanogenezu utječući na ekspresiju melanogenih enzima. Antikancerogena aktivnost sesamolina zasnovana na antiproliferaciji i inhibiciji migracije dokazana je u ljudskim ćelijama raka debelog crijeva. Osim toga, tretman sa sesamolinom mogao bi stimulirati imunološke stanice da pojačaju citolitičku aktivnost za ubijanje Burkittovih ćelija limfoma. Međutim, toksičnost i sigurnost sezamolina nisu prijavljeni. I manje je informacija o eksperimentalnoj studiji in vivo. Ograničena rastvorljivost sezamolina u vodi postaje glavni problem, koji utiče na njegovu farmakološku aktivnost u in vitro eksperimentu i kliničku efikasnost. Stoga je potrebno poboljšanje rastvorljivosti za dalja istraživanja i određivanje profila njegove farmakološke aktivnosti. Budući da ima manje izvještaja koji proučavaju ovo pitanje, to bi moglo postati buduća mogućnost istraživanja.
Ključne riječi: sesamolin; susam lignan; Sesamum indicum L.; farmakološka aktivnost; fizičko-hemijska svojstva; fizičko-hemijsko poboljšanje

1. Uvod
Sesamolin je opštepoznati furfuralni lignan izolovan iz sjemena Sesamum Indicum L. [1,2]. Susam je prvi put uzgajan prije 4000 godine i stoga se smatra jednim od najstarijih usjeva za proizvodnju ulja [3]. Ukupna godišnja proizvodnja susama u svijetu iznosi oko 5.532.000 metričkih tona (MT), od čega 50 posto iz Azije i 30 posto iz Afrike [4]. Sjemenke susama sadrže 50 posto ulja, 25 posto proteina, a ostalo su šećeri, vlaga, vlakna i minerali, a većina susamovih lignana uključuje sezam, sezamin, sezam, a sezam se nalazi u sjemenkama i uljima susama [5 ,6].
Zdravstvenim prednostima sjemenki susama uvelike je doprinio sadržaj lignana kao što su sezamin, sezamol i sezamolin. Nekoliko novijih pregleda predstavilo je farmakološku aktivnost sezamovih ulja in vitro i in vivo eksperimente; neki od njih se također radije fokusiraju na farmakološki učinak jedinjenja susamovih lignana poput sezamola ili sezamina [7–10]. Sesamolin, jedno od glavnih jedinjenja sezamovog lignana, navodno ima antioksidativno, neuroprotektivno i antikancerogeno djelovanje. Bez obzira na to, izvještaj koji se odnosi na istraživanje farmakoloških aktivnosti sezamolina je ograničen.
Uz aktivnosti, nekoliko izvještaja otkriva fizičko-hemijska ograničenja sezamolina koja mogu biti glavni nedostaci njihovih farmakoloških aktivnosti. Sesamolin ima ograničenu rastvorljivost u vodi zbog čega je kategorisan kao klasu II u biofarmaceutskom klasifikacijskom sistemu, što je klasa za nisku rastvorljivost u vodi i jedinjenja visoke permeabilnosti. Jedinjenju koje pripada ovoj klasi potrebno je poboljšanje fizičko-hemijskih svojstava, posebno profila rastvorljivosti, da bi se poboljšao farmakološki efekat i da bi se razvilo kao kandidat za lek [11,12]. Ovo pitanje može postati glavna prepreka istraživanju farmakoloških aktivnosti sezamolina, ali ovo može postati istraživačka prilika za poboljšanje fizičko-hemijskih svojstava sezamolina kako bi se poboljšao terapeutski učinak. Stoga, ovaj pregled predstavlja sažetak informacija o nedavnom ažuriranom istraživanju sezamolina u smislu glavnog izvora, identifikacije i metode pročišćavanja, fizičko-hemijskih svojstava i farmakoloških aktivnosti sezamolina s njegovim mehanizmom djelovanja. Osim toga, razmatrana su ograničenja vezana za fizičko-hemijska svojstva sezamolina i budući istraživački izgledi u povezanom polju.

prednosti pustinjske čistoće
2. Izvor i sadržaj sezamolina u sezamu
Susam (Sesamum indicum L.), iz porodice Pedaliaceae, glavni je izvor sezamolina i drugih jedinjenja lignana uključujući sezamin, sezamol, sezamol, sesamolinol i glikozilovane lignane. Iako je prijavljeno da su drugi sezamovi lignani, kao što je sezamin, izolovani iz drugih biljnih vrsta kao što su Piper sp., Virola sp., Magnolia sp. i Camellia sp., nedavna ažuriranja su pokazala da nijedan izveštaj o sezamolinu nije izolovan iz drugih biljnih porodica osim Sesamum. Međutim, druge vrste Sesamuma kao što su S. angustifolium, S. alatum, S. radiatum, S. angolense Welw., S. calcium Welw. i S. orientale var. malabaricum Nar. prijavljeno je da sadrže i sezamolin u malim količinama [1,7,13]. Nekoliko studija je izvijestilo da se sadržaj sezamolina u sjemenkama susama općenito kretao od 0.2-4,3 mg/g osušenih sjemenki, kao što je prikazano u Tabeli 1.
U većini, sadržaj sezamolina bio je niži od sezamina, dok je sezamol bio najmanje konstituent među tri lignana. Međutim, proporcije sadržaja lignana u različitim sortama susama mogu varirati. Nekoliko faktora kao što su sorte, boja sjemena, geografija i uvjeti uzgoja mogu utjecati na fitokonstituente u sjemenu susama. Korejske sorte crnog susama imale su veći sadržaj sezama od sezamina, ali je prosječan sadržaj lignana korejskog bijelog susama bio veći. Ova studija je također otkrila da se sadržaj lignana značajno razlikovao između dvije godine usjeva (2009. i 2010.), što ukazuje da su ekološki stres i agronomski uslovi utjecali na sadržaj lignana [14]. Za razliku od ovih otkrića, indijske sorte crnog susama sadrže najveći ukupni sadržaj lignana, a bijele sorte susama sadrže visok sadržaj sezama. Visok ukupan sadržaj lignana u sjemenkama crnog susama također su izvijestili Shi et al. u sjemenkama susama koje se uzgajaju u Kini [15,16]. Studija na rodnoj i uzgojnoj liniji sezama iz Tajlanda pokazala je širok raspon sadržaja sezamolina, između 0-2,25 mg/g. Sjemenke susama Landrace, Maehongsong, imale su viši nivo sezamolina od sezamina.
Međutim, uzgojne linije A7250-8 i A7251-7 (BR) nisu sadržavale nikakav sezamolin [17]. Na sadržaj sezamolina u sezamovim uljima može uticati proces prerade ulja. Tehnologije prerade ulja općenito imaju dva različita procesa. Prvi je kada se sjeme prži, a drugi kada se sirovo ulje rafinira. Dakle, postoje različiti proizvodi od susamovih ulja na bazi te prerade ulja, (1) toplo ceđeno susamovo ulje (HPSO), i malo mlin susamovo ulje (SMSO) koriste pržene sjemenke, (2) hladno ceđeno susamovo ulje (CPSO) koristi nepržene sjemenke i (3) rafinirano susamovo ulje (RSO) koristi pržene ili nepržene sjemenke nakon procesa rafiniranja. Ulja prženog susama (HPSO i SMSO) imaju niži nivo sezamolina od CPSO (neprženih sjemenki). Proces pečenja sjemenki sezama može uzrokovati oksidaciju sezamolina koji se pretvara u sezamol, što rezultira niskim sadržajem sezama. U međuvremenu, sezamolin se može razbiti u sezamol tokom procesa izbjeljivanja. Tako je nizak sezamolin uočen i u RSO [15,18].

cistanche leče bolesti bubrega
3. Metoda odvajanja, određivanja i prečišćavanja sezamolina
Sesamolin i druga jedinjenja u sezamu mogu se kvalitativno i kvantitativno identifikovati korišćenjem različitih tehnika odvajanja praćenih tehnikama spektroskopije za analizu. Prije analize jedinjenja u sjemenkama susama ili uzorcima ulja potrebna je preliminarna priprema za uklanjanje interferirajućih spojeva i koncentriranje lignana. Različite metode ekstrakcije kao što su ekstrakcija čvrste faze i ekstrakcija tekućina-tečnost su dobro poznate metode za ovu svrhu. Ekstrakcija u čvrstoj fazi korištenjem čvrstih sorbenata grafen oksida i hidroksiliranog željeznog oksida (Fe3O4) uspješno je primijenjena za pripremu susamovog ulja prije određivanja sezamolina, sezamina i sezamola pomoću tečne hromatografije visokih performansi (HPLC) koja daje 85-93 posto oporavka [20] ]. Ultrazvučna tečno-tečna mikro-ekstrakcija pomoću dubokog eutektičkog otapala (DES) sastavljenog od holin hlorida i p-krezola uz pomoć ultrazvučne obrade za ekstrakciju sezamovog ulja daje visoku efikasnost ekstrakcije za polarne i nepolarne lignane [21].
Među odvajanjem i identifikacijom pomoću hromatografskih tehnika, HPLC pomoću ultraljubičastog (UV/VIS) detektora, fotodiodnog niza (PDA) detektora ili fluorescentnog detektora je najčešće korištena metoda za odvajanje i kvantifikaciju jedinjenja zbog svoje visoke osjetljivosti [7,15, 17,22,23]. Osim toga, tankoslojna hromatografija (TLC), gasna hromatografija (GC) zajedno sa masenim spektrometrom (MS) obezbeđuju dobro odvajanje i pouzdano određivanje. Alternativno, upotreba tankoslojne hromatografije visokih performansi (HPTLC) nudi brzo i isplativo određivanje jedinjenja lignana u susamu u poređenju sa HPLC, što se smatra metodom koja zahteva mnogo vremena. Nedavno je HPTLC metoda korištenjem manje štetnog rastvarača uspješno pokazala uporedive rezultate sa HPLC-DAD [19,24]. Nedavno je analitička tehnika bliske infracrvene spektroskopije (NIRS) zajedno sa kemometrijskom analizom omogućila nedestruktivno, brzo i ekološki prihvatljivo određivanje jedinjenja. NIRS je uspješno predvidio koncentracije sezamolina i sezamina u sjemenkama susama bliske rezultatima HPLC tehnika [25,26].
Sesamolin can be purified from sesame seeds or oil extracts by various chromatography methods such as silica gel column, counter-current chromatography, preparative HPLC, and centrifugal partition chromatography. The other methods are crystallization and resin absorption. The silica gel column, followed by semi-preparative HPLC, success-Molecules 2021, 26, 5849 4 of 16 fully separated sesamolin and sesamin from sesame oils with high purity (>97 posto), ali je bio nizak u prinosu [23,27]. Reshma i saradnici su koristili kristalizaciju za izolaciju lignana susamovog ulja postižući visoku količinu (54 posto prinosa) i 94,4 posto čistoće sezamolina [28].
Separation and purification of sesamolin and sesamin from sesame seeds using the Countercurrent chromatography (CCC) method by employing petroleum ether (60−90 ◦C), ethyl acetate, methanol, and water 1:0.4:1:0.5 (v/v) as solvents system successfully obtained sesamolin with 64% recovery and 98% purity [29]. Hamman also found the separation of sesamolin and sesamin from sesame oil qualitatively when using CCC following with GC/MS method to separate many vegetable oils minor lipids components [30]. Most problems in compound isolation from plant oils samples were the removal of the triacylglycerol, which was>90 posto u uljima prije procesa odvajanja za obogaćivanje ciljanih spojeva. Da bi postigli ovaj cilj, Gournet i saradnici su koristili apsorpciju smole XAD-4 kao preliminarni korak za dobijanje mješavine gotovo bez šećera i polarnih lipida, a zatim su koristili brzu centrifugalnu particionu hromatografiju (FCPC) za odvajanje lignanskih komponenti u sjemenkama susama. ekstrakti [2].
Korištenjem Centrifugalne particione hromatografije (CPC), sezamolin sa 93 posto čistoće uspješno je izolovan iz ekstrakata sjemenki susama i ova metoda se može koristiti s velikom količinom uzorka, što nikada ranije nije prijavljeno [31]. U nedavnom izvještaju, Michailidish et al. Također je uspješno odvojio sezamin i sezamolin u sezamovim uljima sa visokim prinosom i visokom čistoćom koristeći centrifugalnu particionu ekstrakciju (CPE), nakon čega slijedi centrifugalna particiona hromatografija (CPC) koristeći dvofazni sistem rastvarača n-heksan/etil acetat/etanol/voda u omjeru 2:3:3:2 (v/v/v/v) [32].

neuroprotektivni efekti cistanhe ehinakozida
4. Fizičko-hemijska svojstva sezamolina
Sesamolin ima molekulsku formulu C20 H 18O7, a njegova hemijska struktura je prikazana na slici 1. Sesamolin je u grupi lignanskih jedinjenja nastalih spajanjem dva fenilpropanoida povezana centralnim ugljenikom na njihovoj propilnoj strani. Prisustvo metilen dioksifenoksi dijelova ili njegovog metabolita iz fenolne hidroksilne grupe može biti odgovorno za različite biološke aktivnosti sezamolina [8]. Međutim, nijedna studija nije objavila odnos strukture i aktivnosti sezamolina u odnosu na to koja funkcionalna grupa je farmakofor za njegovu biološku aktivnost.

Fizičko-hemijska svojstva sezamolina su sažeta u tabeli 2. Važna fizičko-hemijska svojstva koja utiču na farmakokinetičko i farmakodinamičko ponašanje jedinjenja su rastvorljivost, lipofilnost, donori vodonične veze (HBD), akceptori vodonične veze (HBA) i topološka polarna površina ( TPSA), Sesamolin ima rastvorljivost u vodi manju od 0.1 mg/mL što se smatra praktično nerastvorljivim u vodi. Rastvorljivost u vodi je važno svojstvo za bioaktivne spojeve jer može utjecati na aktivnost u in vitro i in vivo testovima, čak iu kliničkim fazama. Na nivou in vitro eksperimenta, većina in vitro testova koristila je vodeni medij, posebno kada se koristi model ćelije. Testirano jedinjenje mora biti potpuno otopljeno u mediju pri prilagođenoj koncentraciji da bi se procijenio njegov farmakološki učinak. Nadalje, na slici 1. Molekularna struktura sesamolina. Fizičko-hemijska svojstva sezamolina su sažeta u tabeli 2. Važna fizičko-hemijska svojstva koja utiču na farmakokinetičko i farmakodinamičko ponašanje jedinjenja su rastvorljivost, lipofilnost, donori vodonične veze (HBD), akceptori vodonične veze (HBA) i topološka polarna površina ( TPSA), Sesamolin ima rastvorljivost u vodi manju od 0.1 mg/mL što se smatra praktično nerastvorljivim u vodi. Rastvorljivost u vodi je važno svojstvo za bioaktivne spojeve jer može utjecati na aktivnost u in vitro i in vivo testovima, čak iu kliničkim fazama. Na nivou in vitro eksperimenta, većina in vitro testova koristila je vodeni medij, posebno kada se koristi model ćelije. Testirano jedinjenje mora biti potpuno otopljeno u mediju pri prilagođenoj koncentraciji da bi se procijenio njegov farmakološki učinak. Nadalje, u in vivo testu, spoj se mora održavati u specifičnoj koncentraciji u vodenom stanju kako bi se dobro distribuirao kroz krvotok i osigurao visoku bioraspoloživost kako bi se postigao farmakološki učinak na ciljnom mjestu [33]

Postojanje donora vodonične veze (HBD) i akceptora vodonične veze (HBA) u strukturama jedinjenja doprinosi njegovoj rastvorljivosti u vodi, membranskoj apsorpciji i interakcijama ligand-receptor [34]. Sesamolin ima manje od 5 HBD i 2 do 16 HBA što je optimalan broj za membransku apsorpciju i pruža dovoljnu interakciju putem vodikove veze na osnovu Lipinskog pravila pet. Stepen lipofilnosti jedinjenja se izražava kao koeficijent podjele (log P) i njegova važna svojstva koja definiraju apsorpciju preko fosfolipidnog dvosloja. Sesamolin ima log P vrijednost 3. Stepen vrijednosti lipofilnosti manji od 5 je neophodan da bi jedinjenje imalo zadovoljavajuću apsorpciju u membranskim ćelijama. Polarna površina (PSA) bioaktivnog jedinjenja je potrebna da se veže za većinu ciljnih receptora. Polarna površina (PSA) bioaktivnog jedinjenja određuje njegovu apsorpciju. Visok PSA će povećati rastvorljivost u vodi, ali vrijednost PSA veća od 140 Å će smanjiti sposobnost lijeka da prožima ćelije. PSA sezamolina je 64,6 Å, pa se smatra da ima dobru permeabilnost [35–37].

cistanche echinacoside:anti-apoptoza
5. Farmakološke aktivnosti
5.1. Antioksidativna aktivnost
Poznato je da sjemenke susama imaju visoko antioksidativno djelovanje. Umjesto individualnog djelovanja jedinjenja lignana, sinergijski učinak tokoferola i sadržaja lignana u sezamu doprinosi antioksidativnoj aktivnosti sezama [8]. Sesamolin je pokazao nisku antioksidativnu aktivnost u različitim in vitro eksperimentima. Utvrđeno je da sesamolin ispoljava manju antioksidativnu aktivnost od sezamola na osnovu sposobnosti uklanjanja DPPH radikala i radikala bez superoksida [38,39], moći redukcije željeza (FRAP), kapaciteta apsorpcije kisikovih radikala (ORAC), - testa izbjeljivanja karotena, i inhibicija peroksidacije linolne kiseline [40]. Međutim, posljednja dva antioksidativna efekta bila su veća od sezamina [40].
Niska antioksidativna aktivnost sezamolina in vitro može biti uglavnom zbog nedostatka fenolne hidroksilne grupe, dobrog opskrbljivača elektrona slobodnim radikalima. Mogući mehanizam antioksidativne aktivnosti sezamolina predložen je putem prijenosa atoma vodika sa alilnih atoma vodika na C-8 na osnovu teorije funkcionalne gustine (DFT) kompjuterskom studijom i vrijednosti entalpije disocijacije CH veze (BDE) (slika 2) . Stoga je predviđeno da sesamolin ima slabiji antioksidativni kapacitet od sezamina, koji može donirati dva alilna vodonika, i sezamola, koji ima fenolnu hidroksilnu grupu [41]. Uprkos slaboj antioksidativnoj aktivnosti u in vitro sistemu, nekoliko studija je prijavilo antioksidativnu aktivnost sesamolina in vivo. Sesamolin nije inhibirao aktivnost peroksidacije lipida mikrozoma jetre pacova indukovanu ADP-Fe2 plus /NADPH in vitro. Utvrđeno je da sesamolin inhibira peroksidaciju lipida u jetri i bubrezima štakora nakon hranjenja ekstraktom koji sadrži 1 posto sezamolina. Predloženo je da ova aktivnost potiče od metaboličke konverzije sezamolina u dva aktivna metabolita, sezamolinol i sezamol [42]. Antioksidativna aktivnost sezamolina in vivo je podržana od strane druge studije. Sesamolin je imao inhibitorni efekat kroz jedini mikrosomalni sistem u sistemu koristeći mikrozome jetre štakora i kumen hidroperoksid (CumOOH)/Fe2 plus -ADP-NADPH, ali ne u neenzimskom sistemu koji sadrži mitohondrije jetre štakora i Fe2 plus -askorbat [43 ]. Ova studija je također otkrila sinergistički učinak pojedinačnih lignana uključujući sesamolin, sezamin i sezamol sa -tokoferolom ili tokotrienolom koji su generirali veći inhibitorni učinak u oba sistema peroksidacije lipida [43].

5.2. Antimikrobna aktivnost
Sesamolin ima antimikrobnu aktivnost protiv Bacillus cereus, Staphylococcus aureus i Pseudomonas aeruginosa sa 61, 62 i 53 posto inhibicije rasta pri 2 mg/mL [40].
5.3. Neuroprotektivna aktivnost
Patofiziologija neurodegenerativnih bolesti prvenstveno je bila povezana s biohemijskom promjenom komponenti biomolekula u neuronskim stanicama izazvanom oksidativnim stresom. Na to ukazuje prekomjerno stvaranje reaktivnih vrsta kisika (ROS) kao što su vodikov peroksid, superoksid i hidroksilni slobodni radikali zbog uvjeta neravnoteže između ROS i antioksidansa koji dovode do oštećenja biomolekula [44]. Činjenica je da je mozak, koji je važan organ centralnog nervnog sistema (CNS), veoma osetljiv na oksidativni stres [45]. Smanjenje ROS može biti potencijalna meta za prevenciju i liječenje neurodegenerativnih bolesti. S obzirom da se ROS može ukloniti i oslabiti antioksidansima, spojevi koji posjeduju antioksidativno djelovanje mogu biti potencijalni agensi za prevenciju i liječenje terapije neurodegenerativnih bolesti.
Nekoliko studija je procijenilo učinak sezamolina na zaštitnu aktivnost u neuronskim stanicama. Sesamolin je uspješno zaštitio mišje BV-2 mikroglijalne ćelije od smrti ćelija izazvane hipoksijom i ćelijske povrede izazvane hidrogen peroksidom [46,47]. Hipoksija u trajanju od 1 h izazvala je 35 posto ćelijske smrti u neliječenoj grupi. Sesamolin 50 µM uspješno je povećao vitalnost ćelija na 96 posto, nakon čega je uslijedilo smanjenje oslobađanja LDH za 24 posto. Štaviše, sezamolin je pokupio 25 posto ROS izazvanih hipoksijom u ćelijama. ROS izazvan hipoksijom može aktivirati puteve transdukcije signala za ćelijsku smrt, uključujući protein kinaze regulirane ekstracelularnim signalom (ERK1/2), c-Jun NH2-terminalnu kinazu (JNK) i p38 Mitogen aktivirane proteinske kinaze (MAPK) ). Ova studija je potvrdila da su MAPK kaskade inhibirane sezamolinom sprečavanjem fosforilacije ekspresije JNK, p38 MAPK i kaspaze-3 u BV-2 ćelijama u 10-minutnoj hipoksiji. Koristeći različite ćelije, Hou je takođe objavio studiju zaštitnog efekta sesamolina na feohromocitomu štakora (PC12) i primarnim kortikalnim ćelijama pacova [48]. Otkrili su da sesamolin smanjuje oslobađanje LDH pod hipoksijom, što je povezano sa inhibicijom MAPK i kaspaze-3. Nadalje, hipoksijom indukovana smrt stanica slična apoptotici, kao što je otkrivena fluorescentnom bojom koja se vezuje za DNK u kultivisanim kortikalnim ćelijama, značajno je smanjena nakon tretmana sa 50 µM sesamolina.
Kao i ROS, aktivacija mikroglijalnih stanica će osloboditi dušikov oksid (NO), čija prekomjerna proizvodnja može biti toksična za neurone. Transkripcija gena inducibilne-NO sintaze (iNOS) u mikroglija reguliše stvaranje NO u mikroglijama stimulacijom lipopolisaharida (LPS) koji aktivira složeni niz intracelularnih signalnih puteva koji uključuju tirozin kinaze, MAPK i NF-kB posredovanu ekspresiju gena. Ova stimulacija je izazvala oslobađanje faktora tumorske nekroze (TNF-) i olakšala smrt neurona. In vitro studije koje su koristile sesamolin za inhibiciju NO-induciranog LPS-om potvrdile su da sesamolin značajno smanjuje višak stvaranja NO-induciranog LPS-om u mikroglijalnoj ćelijskoj liniji miša BV-2 i primarnim mikroglijalnim stanicama štakora putem redukcije LPS-induciranog p38 MAPK [49]. Neuroprotektivni efekti sezamolina izvedeni su in vivo pomoću gerbila. Prije indukcije fokalne cerebralne ishemije, gerbili su oralno davani s pročišćenim sezaminom ili sirovim ekstraktom sezamovog ulja koji je sadržavao 90 posto sezamina i 10 posto sezamolina 20 mg/kg/dan tokom 4 dana.
Sezamin i ekstrakt sezama koji sadrže sezamolin značajno su smanjili infarktne veličine mozga gerbila kod cerebralne ishemije za 56 posto i 49 posto, respektivno (p < 0.05).="" međutim,="" mehanizam="" in="" vivo="" neuroprotekcije="" nije="" u="" potpunosti="" shvaćen="" [50].="" neurodegenerativne="" bolesti,="" posebno="" alchajmerova="" bolest="" (ad)="" ukazuju="" na="" akumulaciju="" proteina="" uključujući="" ekstracelularne="" amiloidne="" plakove="" (a)="" i="" neurofibrilarne="" čvorove="" (nft)="" u="" mozgu.="" zaštitni="" učinak="" sesamolina="" protiv="" toksičnosti="" a="" procijenjen="" je="" korištenjem="" modela="" crva="" (caenorhabditis="" elegans),="" koji="" su="" eksprimirali="" ljudski="" a="" fragment="" u="" mišiću="" zida="" tijela="" i="" koji="" je="" karakteriziran="" progresivnom="" paralizom.="" osim="" toga,="" taloženje="" a="" u="" neuronima="" dovodi="" do="" slabljenja="" ponašanja="" kemotakse.="" sesamolin="" u="" koncentraciji="" od="" 100="" µg/ml="" pokazuje="" značajno="" odlaganje="" paralize="" za="" 1,83="" h="" kod="" transgenih="" crva.="" ova="" vrijednost="" je="" bila="" viša="" od="" vrijednosti="" ekstrakta="" lista="" ginkgo="" bilobe.="" štaviše,="" istraživanje="" zaštitnog="" efekta="" sezamolina="" protiv="" toksičnosti="" a="" u="" neuronskim="" ćelijama="" upotrebom="" c.="" elegans="" cl2355="" koji="" je="" eksprimirao="" neuronski="" a="" pokazalo="" je="" da="" je="" ponašanje="" hemotakse="" poboljšano="" u="" odnosu="" na="" netretiranu="" grupu="">
5.4. Antimelanogeneza
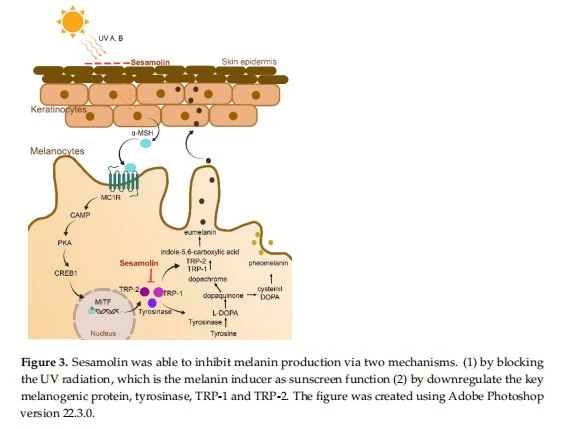
Melanogeneza je proces proizvodnje melanina koji se prirodno javlja u ljudskoj koži kao fotozaštita od izlaganja UV zračenju, ali također uzrokuje pigmentaciju na koži, jer je melanin tamno smeđe boje. Posljedično, to će smanjiti estetsku vrijednost kože. Melanogeneza uključuje interakciju između keratinocita i melanocita. Proces počinje kada su keratinociti izloženi UV zračenju sunčeve svjetlosti i dalje aktiviraju pro-opiomelaninske gene, što dovodi do stvaranja -melanocit-stimulirajućeg hormona (-MSH). -MSH se zatim vezuje za melanokortin-1 receptor (MC1R) na melanocitima. Ovaj angažman aktivira signalni put preko cikličkog adenozin monofosfata (CAMP) i pokreće aktivaciju Protein kinaze-A (PKA). Signalizacija se nastavlja regulacijom transkripcijskih faktora proteina koji vežu element odgovora cAMP (CREB), zatim promovira faktor transkripcije povezan s mikroftalmijom (MITF), što rezultira povećanjem regulacije transkripcionog proteina tirozinaze, TRP-1 i TRP{{ 11}}, koji su uključeni u sintezu melanina. Biohemijska sinteza melanina se dešava u melanosomima počevši od hidroksilacije tirozina u 3,4-dihidroksifenilalanin (L-DOPA), nakon čega slijedi oksidacija u o-dopakinon, a zatim se dopahrom katalizira tirozinazom. Konačno, formiranje eumelanina (tamno smeđe boje) nastaje enzimskom transformacijom dopahroma pomoću TRP-1 i TRP-2 [52,53].
Procijenjeni su antimelanogenezni učinak UV zaštitnog djelovanja i djelovanje sezamolina za zaštitu od sunca u usporedbi s dobro poznatim sredstvima za depigmentaciju, kojičnom kiselinom i -arbutinom. Ova studija je potvrdila da je sesamolin imao funkciju zaštite od sunca prvenstveno apsorbirajući UVB i pokazivao 4- puta veću apsorpciju od kojične kiseline i -arbutina. Iako je sesamolin pokazao nisku inhibiciju tirozinaze pečuraka, ključnog enzima u melanogenezi, pokazao je visoku inhibiciju do 50 posto stanične tirozinaze u koncentraciji od 50 µg/mL u usporedbi s kojičnom kiselinom i -arbutinom, a da nije uzrokovao bilo kakvu toksičnost kod nekancerozne melane vero SK-MEL2 ćelijske linije. Sesamolin od 25 µg/mL smanjio je sadržaj melanina u SK-MEL2 ćelijama. Western blot test je pokazao da sesamolin smanjuje ekspresiju tirozinaze, TRP-1 i TRP-2 u ćelijskoj liniji SK-MEL2. Ova studija sugerira da bi sesamolin mogao inhibirati sintezu melanina kroz dvije faze; (1) zaštita od UV zračenja, induktora melanina, preko funkcije zaštite od sunca, i (2) smanjena regulacija melanogene proteinske tirozinaze, TRP-1 i TRP-2 [54].
Michaildish je također prijavio anti-tirozinazno djelovanje sezamolina na osnovu inhibicije aktivnosti tirozinaze gljiva in vitro. Rezultati su pokazali da je sesamolin pokazao umjerenu antitirozinaznu aktivnost pri 500 µM i slabu aktivnost pri 100 i 25 µM [32]. Sesamolin je takođe pokazao visoku antimelanogeneznu aktivnost u ćelijama raka kože (B16F10). Ova studija je pokazala da sesamolin inhibira ekspresiju nivoa mRNA povezanih s melanogenezom, kao i proteina kao što su tirozinaza i TRP-1 i TRP-2 u koncentraciji od 50 µM [55]. Slika 3 prikazuje sažetak mehanizma inhibicije proizvodnje melanina sezamolinom. Molecules 2021, 26, x ZA PEER RECENZIJU 8 od 16 Efekat zaštite od UV zračenja i anti-melanogeneza i funkcija sezamolina za zaštitu od sunca procenjeni su u poređenju sa dobro poznatim agensima za depigmentaciju, kojičnom kiselinom i -arbutinom. Ova studija je potvrdila da sezamolin ima funkciju zaštite od sunca prvenstveno apsorbirajući UVB i pokazuje 4-puto veću apsorpciju od kojične kiseline i -arbutina. Iako je sesamolin pokazao nisku inhibiciju tirozinaze pečuraka, ključnog enzima u melanogenezi, pokazao je visoku inhibiciju do 50 posto stanične tirozinaze u koncentraciji od 50 µg/mL u usporedbi s kojičnom kiselinom i -arbutinom, a da nije uzrokovao bilo kakvu toksičnost kod nekancerozne melane vero SK-MEL2 ćelijske linije. Sesamolin od 25 µg/mL smanjio je sadržaj melanina u SK-MEL2 ćelijama.
Western blot test je pokazao da sesamolin smanjuje ekspresiju tirozinaze, TRP-1 i TRP-2 u ćelijskoj liniji SK-MEL2. Ova studija sugerira da bi sesamolin mogao inhibirati sintezu melanina kroz dvije faze; (1) zaštita od UV zračenja, induktora melanina, preko funkcije zaštite od sunca, i (2) smanjena regulacija melanogene proteinske tirozinaze, TRP-1 i TRP-2 [54]. Michaildish je također prijavio anti-tirozinazno djelovanje sezamolina na osnovu inhibicije aktivnosti tirozinaze gljiva in vitro. Rezultati su pokazali da je sesamolin pokazao umjerenu aktivnost anti-tirozinaze na 500 µΜ i slabu aktivnost na 100 i 25 µΜ [32]. Sesamolin je takođe pokazao visoku antimelanogeneznu aktivnost u ćelijama raka kože (B16F10). Ova studija je pokazala da sesamolin inhibira ekspresiju nivoa mRNA povezanih s melanogenezom, kao i proteina kao što su tirozinaza i TRP-1 i TRP-2 u koncentraciji od 50 µΜ [55]. Slika 3 prikazuje sažetak mehanizma inhibicije proizvodnje melanina sezamolinom.
5.5. Antikancerogena aktivnost
Sesamolin je pokazao inhibiciju rasta i indukciju apoptoze u ćelijama humane limfoidne leukemije (Molt 4B). Antiproliferacija je bila način ovisan o koncentraciji sa IC90 od 90 µM. Na apoptozu izazvanu sesamolinom ukazuju morfološke promjene, fragmentacija DNK i formiranje apoptotičkih tijela nakon 3 dana tretmana sa 90 µM sesamolina. U poređenju sa drugim jedinjenjima u sezamovom ulju, epizesaminu i sezamolu iz drugih studija, inhibicija rasta sezamolina bila je efikasnija. Međutim, ova studija nije predstavila detaljan mehanizam puta indukcije apoptoze ili fragmentacije DNK [56].
Efekti sesamolina na aktivnost inhibicije proliferacije također su procijenjeni protiv humanog raka debelog crijeva HCT116. Antiproliferacija zasnovana na MTT testu pokazala je da sesamolin značajno inhibira proliferaciju na vremenski ovisan način i značajno inhibira migracionu sposobnost. Proliferacija, diferencijacija i apoptoza ćelija raka regulisani su signalnim putem Janus kinaze 2 (JAK2) i signalnog puta transkripcije aktivatora- 3 (STAT3). Sesamolin 20 µM značajno je smanjio ekspresiju p-JAK2/STAT3 na koju ukazuje smanjenje p-JAK2/STAT3 trake na western blotu. Sesamolin i AG490 (pozitivna kontrola) pokazali su sinergistički efekat. Njihova kombinacija je značajno smanjila ekspresiju p-STAT3. Migracija ćelija raka je odredba za metastaze, a korelira sa povećanjem MMP 1, 2 i 9.
Ova studija je pokazala da sesamolin smanjuje ekspresiju MMP u HCT116 kada je ispitan qRT-PCR. Sesamolin je potencijalno antiproliferativno sredstvo za rak debelog crijeva inhibicijom aktivacije JAK2/STAT3 puta i sprječavanjem ćelijske invazije putem inhibicije IL-6-indukovane ekspresije MMP [57]. Druga studija je istraživala sesamolin zbog njegove antikancerogene aktivnosti u ćelijama Burkittovog limfoma raka krvi, Raji, poboljšavajući aktivnost lize NK ćelija [58,59]. NK ćelija je jedna od imunih ćelija koja ima sposobnost da identifikuje i razlikuje normalne ćelije i ćelije raka nego da ubija tumorske ćelije. Aktivnost ubijanja (citoliza) se pokreće aktivacijom aktivacijskih receptora u NK ćelijama, prvenstveno NKG2D, pomoću NKG2D liganda (NKG2DL). ULBP-1, ULBP-2, ULBP-3, MIC-A i MIC-B su bili NKG2DL čija je ekspresija postepeno povećana progresijom raka na površini ćelije.
Suprotno tome, normalne ćelije imaju nisku ekspresiju NKG2DL. Stoga, NKG2D receptori u NK ćelijama mogu koristiti NKG2DL da lako prepoznaju ćelije raka u okolnom normalnom tkivu. Vezivanje aktiviranog NKG2D receptora u NK ćelijama sa NKG2DL eksprimiranim u ćelijama raka dovodi do signalnog puta za oslobađanje citokina i izazivanje citotoksičnosti za ubijanje tumorskih ćelija. Međutim, nivoi NKG2DL su se smanjili u kasnim stadijumima tumora, čime je smanjena osetljivost ćelija raka prema NK ćelijama, što je rezultiralo niskom aktivnošću citolize. Štaviše, prijavljeno je da neke ćelije raka imaju prirodno nisku ekspresiju NKG2DL, kao što su Ramos, Hep3B i Raji [60,61]. Iz tog razloga, povećanje jedne ili obje ekspresije NKG2D u imunim stanicama i NKG2DL u tumorskim stanicama može modulirati antitumorski imunološki odgovor i može biti obećavajuća ciljana terapija protiv raka. Kim je prijavio korištenje sesamolina i sezamina za eskalaciju ekspresije NKG2DL radi poboljšanja citolitičke aktivnosti posredovane NK ćelijama u ćelijskoj liniji humanog Burkittovog limfoma (Raji), koja ima nisku osjetljivost prema NK stanicama [58].
Predtretman Raji ćelija sa 40 µM sesamolina tokom 72 h uspešno je povećao osetljivost na NK ćelije, što je rezultiralo povećanjem citotoksičnosti u poređenju sa netretiranom grupom. Štaviše, potvrđeno je da je povećanje citolize praćeno eskalacijom ekspresije NKG2DLs ULBP-1, ULBP-2 i MICA/B u Raji ćelijama. Povećanje ERK fosforilacijske trake u western blot testu i oslabljena citotoksičnost na testu blokiranja inhibitora ERK dokazali su da je stimulacija ERK signalnog puta sesamolinom bila uključena u eskalaciju ekspresije NKG2DL. Osim ciljanja na NKG2DL, povećanje citolitičke aktivnosti posredovano NK ćelijama može se postići povećanjem ekspresije NKG2D receptora u NK ćelijama. Da bi se istražio direktan efekat sesamolina na NK ćelije, i NK ćelije (NK-92MI) i Raji ćelije su tretirane sesamolinom. Citolitička aktivnost je povećana u NK-92MI ćelijama tretiranim sesamolinom i na Raji ćelijama tretiranim sesamolinom u poređenju sa netretiranom grupom. Posljedično, kada su i Raji i NK{13}}MI ćelije tretirane sesamolinom, također je uočena povećana citolitička aktivnost NK ćelija.
Najveća citotoksičnost sezamolina prema Raji i NK-92MI ćelijama bila je pri 20 µg/mL, odnosno 40 µg/mL. Pojačana ekspresija membranskog markera u degranulaciji NK ćelija tokom citolitičke aktivnosti (CD107a) uočena je u NK-92MI ćelijama tretiranim sesamolinom na način koji zavisi od koncentracije i vremena inkubacije. Štaviše, ova studija je potvrdila da je ekspresija NKG2D u NK ćelijama bila povišena nakon što je NK-92MI tretiran sa 40 µg/mL tokom 72 h. Sesamolin je pokrenuo fosforilaciju p38, ERK1/2 i JNK puteva u NK ćelijama kako bi poboljšao citolitičku aktivnost [59]. Efekat sezamolina na citolitičku aktivnost regulacijom imunoloških odgovora na ćelije raka dalje je istražen u dendritskim ćelijama (DC) [62]. Studija je pokazala da je sesamolin stimulirao DC-e da pojačaju aktivnosti ubijanja i migracije NK-ćelija u zajedničkom uzgoju DC-a i NK-ćelija. Farmakološke aktivnosti sezamolina i njegov mehanizam djelovanja sumirani su u tabeli 3.

Prednost ekstrakta cistanche: protiv starenja
6. Farmakokinetika
Dalja istraživanja farmakološke aktivnosti u modelu in vivo korištenjem individualnog sezamolina nisu široko istražena. Nekoliko studija koristilo je životinjske modele za proučavanje farmakološke aktivnosti sezamolina i drugih lignana u sjemenkama ili uljima susama. Međutim, nisu prijavili farmakokinetički profil sezamolina nakon primjene [43,63–65]. Dvije studije su izvijestile o bioraspoloživosti sezamolina in vivo modela. Kangova studija je istraživala učinak sezamolina na peroksidaciju lipida koristeći model štakora koji je hranjen sa 1 posto sezamolina. Manje od 25 posto unesenog sezamolina se apsorbiralo, metaboliziralo i direktno izlučilo. U debelom crijevu otkriven je visok nivo sezamolina u obliku njegovih konjugiranih metabolita. U plazmi, želucu, jetri, bubrezima i tankom crijevu otkrivene su samo količine u tragovima. Sesamolin nije uticao na tjelesnu težinu pacova, ali je utvrđeno povećanje težine jetre [42]. Druga studija koju je uradila Ide izvestila je da je sesamolin promenio ekspresiju gena proteina uključenih u oksidaciju masnih kiselina u jetri kod pacova u većem stepenu od sezamina, ali u istom stepenu kao i epizezamin [66]. Koncentracija sezamolina u serumu se povećala ubrzo nakon oralne primjene, dostigla vrhunac nakon 7 do 9 h, a smanjila se nakon poluživota od 7,1 ± 0.4 h, što je bilo duže od sezamina i epizezamina (4,7 ± {{16 }}.2 i 6.1 ± 0.3, respektivno). Sesamolin se visoko akumulirao u serumu i jetri u poređenju sa sezaminom i epizezaminom. Međutim, utvrđeno je i povećanje težine jetre kod pacova koji su uzimali dijetu sa sesamolinom. Nema izvještaja koji se odnosi na kliničku studiju sezamolina kod ljudi ili farmakokinetičku studiju na životinjama. Međutim, postoji klinička studija koja koristi sjemenke i ulje susama, koji sadrže sezamolin, kako bi se ispitao učinak susamovih lignana (sezamina i sezamolina) na nivo tokoferola u ljudskoj plazmi. Prijavljeno je da se sesamolin i sezamin pripisuju povećanju tokoferola u plazmi i inhibiciji razgradnje vitamina E kod ljudi bez nuspojava [67,68].

ekstrakti cistanche
7. Budući izgledi
Kao i druga jedinjenja lignana sezama, prijavljeno je da sesamolin ima različite farmakološke aktivnosti uglavnom testirane na in vitro modelima. Ove farmakološke aktivnosti pokazale su se prema nekim ćelijskim linijama sa niskim efektivnim koncentracijama (<100 µm).="" this="" matter="" could="" give="" rise="" to="" some="" pros="" and="" cons.="" a="" significant="" effect="" at="" low="" concentration="" represents="" a="" strong="" activity,="" especially="" for="" a="" protective="" activity="" that="" does="" not="" aim="" to="" kill="" the="" cells.="" on="" the="" other="" hand,="" the="" difficulties="" to="" increase="" the="" concentration,="" especially="" in="" the="" in="" vitro="" experiments,="" which="" mostly="" use="" an="" aqueous="" medium,="" are="" causing="" limitations="" in="" evaluating="" the="" activity="" or="" level="" of="" toxicity="" of="">
Sesamolin je imao nisku citotoksičnost protiv nekih ćelija raka, npr. SK-MEL-2 i HCT-116 [54,69]. Ispitivanje citotoksičnosti sezamolina u poređenju sa sezamolom i sezaminom protiv SK-MEL-2 pokazalo je da ova tri jedinjenja sezama nude potencijalnu sposobnost da inhibiraju rast ćelija melanoma na način ovisan o koncentraciji i vremenu. Međutim, sezamolin je pokazao nisko smanjenje vitalnosti stanica melanoma u koncentraciji između 50 µM do 100 µM. Samo sezamol je dao 50 posto inhibitornu koncentraciju (IC50) protiv melanoma uprkos tome što je potrebna visoka koncentracija tretmana (1893,1 ± 170,7 µM). U studiji je spomenuto da se sesamolin ne može dobro otopiti u mediju stanične kulture u koncentraciji većoj od 200 µM, što uzrokuje granično ispitivanje pri višoj koncentraciji [65]. Ovi nalazi upućuju na to da iako je sesamolin imao moć da inhibira rast stanica melanoma, ograničenje vezano za topljivost ometa citotoksični učinak.
Još jedan problem rastvorljivosti uočen je kada je sesamolin testiran na njegovu in vitro ekstracelularnu antioksidativnu aktivnost. Iako je sezamolin pokazao nisku sposobnost čišćenja prema DPPH i peroksil slobodnim radikalima, pokazao je veću aktivnost čišćenja prema superoksidnim radikalima na 100 µM. Ispitivanje u većem rasponu koncentracija nije bilo moguće uraditi zbog njegove niske rastvorljivosti u vodi. Osim što je uzrokovan činjenicom da molekularnoj strukturi sezamolina nedostaje fenolna hidroksilna grupa, problem rastvorljivosti također može doprinijeti poteškoćama u istraživanju tačne antioksidativne aktivnosti. Problemi rastvorljivosti takođe mogu biti jedan od razloga zašto nema izveštaja o IC50 sezamolina kada se procenjuje njegova citotoksičnost in vitro. Daljnje istraživanje farmakološke aktivnosti u in vivo modelu korištenjem pojedinačnog sezamolina nije široko istraženo, uglavnom u ekstraktima koji sadrže sezamolin. Razvijene su različite strategije za prevazilaženje problema fizičko-hemijskih svojstava koji ometa farmakološke aktivnosti bioaktivnih jedinjenja.
Primeri eksploatacije sistema za isporuku lekova za poboljšanje rastvorljivosti sezamina bili su formiranje sistema za isporuku micela, čvrste disperzije i nano-emulzije nosača. Očigledno je poboljšanje rastvorljivosti, profila rastvaranja, oralne bioraspoloživosti, intestinalne permeabilnosti sezamina, a posljedično i farmakološke aktivnosti sezamina [70–72]. Zanimljivo je da postoji manje studija o poboljšanju fizičko-hemijskih svojstava sezamolina. Ovo pitanje je otvoreno za dalje istraživanje i postalo je jedna od perspektivnih istraživačkih mogućnosti. Osim toga, istraživanja farmakološke aktivnosti ovog spoja su još uvijek otvorena, posebno kada se problem rastvorljivosti može riješiti. Nalazi ove studije sugeriraju da se sesamolin čini obećavajućim kao bioaktivno jedinjenje in vivo i korisno za zdravlje.
S druge strane, potrebne su daljnje kliničke studije i sigurnosne studije. Može se klinički prevesti za najbolju upotrebu specijalnog i diferencijalnog tretmana kože na osnovu njegovog verifikovanog antioksidativnog kapaciteta i antimelanogeneze u kozmetičke svrhe, i dokaza o antitumorskom delovanju za lečenje raka kože. Što se nas tiče, literatura o ispitivanju sezamolina kao što su metabolički profili, biološka aktivnost in vivo i studije primjene je oskudna. Nadamo se da bi ovaj pregledni članak mogao rasvijetliti daljnje studije kako bi se popunile praznine u ovoj oblasti sumirajući trenutni status istraživanja sesamolina.

cistanche stems
8. Zaključci
Sezamolin je jedno od glavnih jedinjenja lignana u sjemenkama i ulju susama i nalazi se u raznim susamom, bijelom, smeđom i crnom u različitim procentima. Sesamolin se može izolovati i pročistiti hromatografskim tehnikama, a zatim razjasniti strukturu pomoću tehnika spektrofotometrije. Farmakološke aktivnosti sezamolina uključuju antioksidanse, inhibiciju kožnog melanina, ćelijski zaštitni učinak protiv raznih ćelijske smrti izazvane stresom i efekte ubijanja stanica raka putem proliferativne inhibicije i imunološke stimulacije. Sesamolin, stoga, može biti potencijalno terapeutsko sredstvo protiv mnogih bolesti i može se dalje istraživati. Budući da postoji nekoliko izvještaja o direktnom citotoksičnom učinku sesamolina na ćelije raka, nijedna publikacija nije prijavila njegov IC50. Štaviše, njegovi mehanizmi ubijanja ostaju nejasni. Osim toga, nisu prijavljene farmakološke aktivnosti sezamolina u eksperimentu in vivo i njihova sigurnost. Prikazana je samo alergijska reakcija kože [73]. Osnovni mehanizam koji sezamolin koristi ljudima nije u potpunosti očigledan. Problem sa sezamolinom mogao bi biti zbog njegovih fizičko-hemijskih svojstava, koja imaju nisku topljivost u vodi. Stoga je teško povećati koncentraciju u in vitro eksperimentalnim uvjetima korištenjem ćelijskog modela i dat će nisku bioraspoloživost u in vivo eksperimentu. Smatra se da je poboljšanje rastvorljivosti važno za poboljšanje sezamolina i provođenje daljeg istraživanja profila farmakološke aktivnosti. Osim toga, bilo je nekoliko izvještaja koji proučavaju poboljšanje fizičko-hemijskih svojstava sezamolina; ovo bi se moglo dalje istraživati, postajući potencijalna istraživačka prilika u ovoj oblasti.
Reference
1. Bedigian, D.; Seigler, DS; Harlan, JR Sesamin, Sesamolin i porijeklo sezama. Biochem. Syst. Ecol. 1985, 13, 133–139. [CrossRef]
2. Grougnet, R.; Magiatis, P.; Laborie, H.; Lazarou, D.; Papadopoulos, A.; Skaltsounis, A.-L. Sesamolinol glukozid, disaminil eter i drugi lignani iz sjemenki susama. J. Agric. Food Chem. 2012, 60, 108–111. [CrossRef]
3. Bedigian, D.; Harlan, JR Dokazi za uzgoj sezama u antičkom svijetu. Econ. Bot. 1986, 40, 137–154. [CrossRef]
4. Myint, D.; Gilani, SA; Kawase, M.; Watanabe, KN Održiva proizvodnja sezama (Sesamum indicum L.) kroz poboljšanu tehnologiju: pregled proizvodnje, izazova i mogućnosti u Mjanmaru. Održivost 2020, 12, 3515. [CrossRef]
5. Moazzami, AA; Kamal-Eldin, A. Sjeme susama je bogat izvor dijetetskih lignana. J. Am. Oil Chem. Soc. 2006, 83, 719. [CrossRef]
6. Pathak, N.; Bhaduri, A.; Bhat, KV; Rai, AK Praćenje ekspresije gena sezamin sintaze kroz zrelost sjemena u divljim i kultiviranim vrstama sezama—otisak pripitomljavanja. Plant Biol. 2015, 17, 1039–1046. [CrossRef] [PubMed] 7. Dar, AA; Arumugam, N. Lignans of Sesame: Purification Methods, Biological Activities, and Biosynthesis—A Review. Bioorg. Chem. 2013, 50, 1–10. [CrossRef]
8. Wan, Y.; Li, H.; Fu, G.; Chen, X.; Chen, F.; Xie, M. Odnos antioksidativnih komponenti i antioksidativne aktivnosti ulja sezamovog semena. J. Sci. Food Agric. 2015, 95, 2571–2578. [CrossRef] [PubMed]
9. Afroz, M.; Džihad, SMNK; Uddin, SJ; Rouf, R.; Rahman, MS; Islam, MT; Khan, IN; Ali, ES; Aziz, S.; Shilpi, JA; et al. Sistematski pregled antioksidativnog i antiinflamatornog djelovanja ulja sezama (Sesamum indicum L.) i daljnja potvrda antiinflamatornog djelovanja kemijskim profiliranjem i molekularnim spajanjem. Phytother. Res. 2019, 33, 2585–2608. [CrossRef]
10. Wu, M.-S.; Aquino, LBB; Barbaza, MYU; Hsieh, C.-L.; Castro-Cruz, KAD; Yang, L.-L.; Tsai, P.-W. Anti-inflamatorna i antikancerogena svojstva bioaktivnih jedinjenja iz Sesamum indicum L.—Pregled. Molecules 2019, 24, 4426. [CrossRef] [PubMed]
11. Sachan, N.; Bhattacharya, A.; Pushkar, S.; Mishra, A. Biopharmaceutical Classification System: A Strategic Tool for Oral Drug Delivery Technology. Azijski J. Pharm. 2009, 3, 76. [CrossRef]
12. Dahan, A.; Wolk, O.; Agbaria, R. Privremena in-Silico klasifikacija biofarmaceutike (BCS) za usmjeravanje razvoja oralnih lijekova. Drug Des. Dev. Ther. 2014, 8, 1563–1575. [CrossRef] [PubMed]
13. Kamal-Eldin, A.; Appelqvist, L.Å.; Yousif, G. Analiza lignana u uljima sjemenki iz četiri vrste sezama: poređenje različitih kromatografskih metoda. J. Am. Oil Chem. Soc. 1994, 71, 141–147. [CrossRef]
14. Kim, JH; Seo, WD; Lee, SK; Lee, YB; Park, CH; Ryu, HW; Lee, JH Komparativna procjena sastavnih komponenti, antioksidativnih efekata i ekstrakcija lignana iz sjemena korejskog bijelog i crnog susama (Sesamum indicum L.) za različite godine usjeva. J. Funct. Foods 2014, 7, 495–505. [CrossRef]
15. Shi, L.-K.; Liu, R.-J.; Jin, Q.-Z.; Wang, X.-G. Sadržaj lignana u sjemenkama susama i komercijalnim susamovim uljima u Kini. J. Am. Oil Chem. Soc. 2017, 94, 1035–1044. [CrossRef]
16. Dar, AA; Kančarla, PK; Chandra, K.; Sodhi, YS; Arumugam, N. Procjena varijabilnosti sadržaja lignana i masnih kiselina u germplazmi Sesamum indicum LJ Food Sci. Technol. 2019, 56, 976–986. [CrossRef] [PubMed]
17. Rangkadilok, N.; Pholphana, N.; Mahidol, C.; Wongyai, W.; Saengsooksree, K.; Nookabkaew, S.; Satayavivad, J. Varijacija sezamina, sezamolina i tokoferola u sjemenkama i uljnim proizvodima sezama (Sesamum indicum L.) u Tajlandu. Food Chem. 2010, 122, 724–730. [CrossRef]
18. Moazzami, AA; Haese, SL; Kamal-Eldin, A. Sadržaj lignana u sjemenkama i proizvodima sezama. EUR. J. Lipid Sci. Technol. 2007, 109, 1022–1027. [CrossRef]
19. Mikropoulou, EV; Petrakis, EA; Argyropoulou, A.; Mitakou, S.; Halabalaki, M.; Skaltsounis, LA Kvantifikacija bioaktivnih lignana u sjemenkama susama pomoću HPTLC denzitometrije: Komparativna procjena pomoću HPLC-PDA. Food Chem. 2019, 288, 1–7. [CrossRef]
20. Wu, L.; Yu, L.; Ding, X.; Li, P.; Dai, X.; Chen, X.; Zhou, H.; Bai, Y.; Ding, J. Magnetna čvrsta faza ekstrakcije na bazi grafenskog oksida za određivanje lignana u susamovom ulju. Food Chem. 2017, 217, 320–325. [CrossRef]
21. Liu, W.; Zhang, K.; Yang, G.; Yu, J. Visoko efikasna tehnika mikroekstrakcije zasnovana na dubokom eutektičkom rastvaraču formiranom od holin hlorida i P-krezola za istovremeno određivanje lignana u sezamovim uljima. Food Chem. 2019, 281, 140–146. [CrossRef] [PubMed]
22. Schwertner, HA; Stankus, JJ Karakterizacija fluorescentnih spektra i intenziteta različitih lignana: primjena na HPLC analizu s fluorescentnom detekcijom. J. Chromatogr. Sci. 2015, 53, 1481–1484. [CrossRef]
23. Dar, AA; Verma, NK; Arumugam, N. Ažurirana metoda za izolaciju, pročišćavanje i karakterizaciju klinički važnih antioksidativnih lignana—sezamin i sezamolin, iz sezamovog ulja. Ind. Crop. Prod. 2015, 64, 201–208. [CrossRef]
24. Sukumar, D.; Arimboor, R.; Arumughan, C. HPTLC otisak prsta i kvantifikacija lignana kao markera u sezamovom ulju i njegovim polibiljnim formulacijama. J. Pharm. Biomed. Anal. 2008, 47, 795–801. [CrossRef]
25. Liu, Y.; Xia, Z.; Yao, L.; Wu, Y.; Li, Y.; Zeng, S.; Li, H. Diskriminacija geografskog porijekla susamovih ulja i određivanje lignana bliskom infracrvenom spektroskopijom u kombinaciji s kemometrijskim metodama. J. Food Compos. Anal. 2019, 84, 103327. [CrossRef]
26. Xia, Z.; Yi, T.; Liu, Y. Brzo i nedestruktivno određivanje sezamina i sezamolina u kineskom sezamu bliskom infracrvenom spektroskopskom spregom s kemometrijskom metodom. Spectrochim. Acta Part A Mol. Biomol. Spectrosc. 2020, 228, 117777. [CrossRef]
27. Lee, J.; Choe, E. Ekstrakcija jedinjenja lignana iz prženog susamovog ulja i njihovi efekti na autooksidaciju metil linoleata. J. Food Sci. 2006, 71, C430–C436. [CrossRef]
28. Reshma, MV; Balachandran, C.; Arumughan, C.; Sundaresan, A.; Sukumaran, D.; Thomas, S.; Saritha, SS Ekstrakcija, odvajanje i karakterizacija lignana sezamovog ulja za nutraceutske primjene. Food Chem. 2010, 120, 1041–1046. [CrossRef]
29. Wang, X.; Lin, Y.; Geng, Y.; Li, F.; Wang, D. Preparativna separacija i prečišćavanje sezamina i sezamolina iz sjemenki susama pomoću hromatografije velike brzine protiv struje. Cereal Chem. J. 2009, 86, 23–25. [CrossRef]
30. Hammann, S.; Englert, M.; Müller, M.; Vetter, W. Ubrzano razdvajanje klasa lipida podložnih GC-u u biljnim uljima kontrastrujnom hromatografijom u kostrujnom modu. Anal. Bioanal. Chem. 2015, 407, 9019–9028. [CrossRef] [PubMed]
31. Jeon, J.-S.; Park, CL; Syed, AS; Kim, Y.-M.; Cho, IJ; Kim, CY Preparativno odvajanje sezamina i sezamolina iz obezmašćenog sezamovog obroka putem centrifugalne particione hromatografije sa uzastopnim ubrizgavanjem uzorka. J. Chromatogr. B 2016, 1011, 108–113. [CrossRef]
32. Michailidis, D.; Angelis, A.; Aligiannis, N.; Mitakou, S.; Skaltsounis, L. Oporavak sezamina, sezamolina i manjih lignana iz sezamovog ulja korištenjem tečno-tečnih ekstrakcija i hromatografije bez čvrste podloge i evaluacija njihovih svojstava enzimske inhibicije. Front. Pharmacol. 2019, 10, 723. [CrossRef]
34. Savjani, KT; Gajjar, AK; Savjani, JK Rastvorljivost u lijekovima: važnost i tehnike poboljšanja. ISRN Pharm. 2012, 2012, 195727. [CrossRef]
34. Babine, RE; Bender, SL Molekularno prepoznavanje proteinsko-ligandnih kompleksa: Primjena u dizajnu lijekova. Chem. Rev. 1997, 97, 1359–1472. [CrossRef]
35. Lipinski, CA; Lombardo, F.; Dominy, BW; Feeney, PJ Eksperimentalni i računarski pristupi procjeni rastvorljivosti i permeabilnosti u postavkama za otkrivanje i razvoj lijekova. Adv. Lijek. Deliv. Rev. 1997, 23, 3–25. [CrossRef]
36. Gies, JP; Landry, Y. Targets Drug: Molecular Mechanisms of Drug Action. U praksi medicinske hemije, 2. izd.; Wermuth, CG, ur.; Akademija: Amsterdam, Holandija; London, UK, 2003; ISBN 978-0-12-744481-9.
38. Kumar, BRP; Soni, M.; Bhikhalal, UB; Kakkot, IR; Jagadeesh, M.; Bommu, P.; Ranjan, MJ Analiza fizičko-hemijskih svojstava lijekova iz prirode. Med. Chem. Res. 2010, 19, 984–992. [CrossRef]
39. Suja, KP; Jayalekshmy, A.; Arumughan, C. Ponašanje uklanjanja slobodnih radikala antioksidativnih jedinjenja sezama (Sesamum indicum L.) u DPPH(*) sistemu. J. Agric. Food Chem. 2004, 52, 912–915. [CrossRef] [PubMed]
39. Kuo, P.-C.; Lin, M.-C.; Chen, G.-F.; Yiu, T.-J.; Tzen, JTC Identifikacija jedinjenja rastvorljivih u metanolu u sezamu i procena antioksidativnog potencijala njegovih lignana. J. Agric. Food Chem. 2011, 59, 3214–3219. [CrossRef] [PubMed]
40. Mahendra Kumar, C.; Singh, SA Bioaktivni lignani iz sezama (Sesamum indicum L.): Procjena njihovih antioksidativnih i antibakterijskih učinaka za primjenu u hrani. J. Food Sci. Technol. 2015, 52, 2934–2941. [CrossRef] [PubMed]
41. Papadopoulos, AG; Nenadis, N.; Sigalas, MP DFT studija aktivnosti uklanjanja radikala lignana sezamovog ulja i odabranih in vivo metabolita sezamina. Račun. Theor. Chem. 2016, 1077, 125–132. [CrossRef]
42. Kang, MH; Naito, M.; Tsujihara, N.; Osawa, T. Sesamolin inhibira peroksidaciju lipida u jetri i bubrezima pacova. J. Nutr. 1998, 128, 1018–1022. [CrossRef] [PubMed]
43. Ghafoorunissa; Hemalatha, S.; Rao, MVV sezamovi lignani pojačavaju antioksidativnu aktivnost vitamina E u sistemima peroksidacije lipida. Mol. Cell. Biochem. 2004, 262, 195–202. [CrossRef] [PubMed]
44. Kim, GH; Kim, JE; Rhie, SJ; Yoon, S. Uloga oksidativnog stresa u neurodegenerativnim bolestima. Exp. Neurobiol. 2015, 24, 325–340. [CrossRef] [PubMed]
45. Singh, A.; Kukreti, R.; Sašo, L.; Kukreti, S. Oksidativni stres: ključni modulator u neurodegenerativnim bolestima. Molecules 2019, 24, 1583. [CrossRef] [PubMed]
46. Hou, RC-W.; Wu, C.-C.; Yang, C.-H.; Jeng, K.-CG Zaštitni efekti sezamina i sesamolina na ćelijsku liniju mikroglije miša BV-2 pod hipoksijom. Neurosci. Lett. 2004, 367, 10–13. [CrossRef]
47. Hou, RC-W.; Wu, C.-C.; Huang, J.-R.; Chen, Y.-S.; Jeng, K.-CG Oksidativna toksičnost u BV-2 mikroglija ćelijama: Sesamolin neuroprotekcija H2O2 povrede koja uključuje aktivaciju P38 mitogenom aktivirane protein kinaze. Ann. NY Acad. Sci. 2005, 1042, 279–285. [CrossRef]
48. Hou, RC-W.; Huang, H.-M.; Tzen, JTC; Jeng, K.-CG Zaštitni efekti sezamina i sesamolina na hipoksične neuronske i PC12 ćelije. J. Neurosci. Res. 2003, 74, 123–133. [CrossRef]
49. Hou, RC-W.; Chen, H.-L.; Tzen, JTC; Jeng, K.-CG Efekat antioksidansa sezama na LPS-indukovanu proizvodnju NO od strane BV2 mikroglijalnih ćelija. Neuroreport 2003, 14, 1815–1819. [CrossRef]
50. Cheng, F.-C.; Jinn, T.-R.; Hou, RCW; Tzen, JTC Neuroprotektivni efekti sezamina i sesamolina na mozak gerbila kod cerebralne ishemije. Int. J. Biomed. Sci. 2006, 2, 284–288.
51. Keowkase, R.; Shoomarom, N.; Bunargin, W.; Sitthithaworn, W.; Weerapreeyakul, N. Sesamin i Sesamolin smanjuju amiloidnu toksičnost u transgenom Caenorhabditis elegans. Biomed. Pharmacother. 2018, 107, 656–664. [CrossRef]
52. Choi, M.-H.; Shin, H.-J. Efekat kvercetina protiv melanogeneze. Kozmetika 2016, 3, 18. [CrossRef]
53. Chae, J.; Subedi, L.; Jeong, M.; Park, Y.; Kim, C.; Kim, H.; Kim, S. Gomisin N inhibira melanogenezu kroz regulaciju PI3K/Akt i MAPK/ERK signalnih puteva u melanocitima. Int. J. Mol. Sci. 2017, 18, 471. [CrossRef] [PubMed]
54. Srisayam, M.; Weerapreeyakul, N.; Kanokmedhakul, K. Inhibicija dvije faze sinteze melanina pomoću Sesamola, Sesamina i Sesamolina. Asian Pac. J. Trop. Biomed. 2017, 7, 886–895. [CrossRef]
55. Baek, S.-H.; Kang, M.-G.; Park, D. Inhibitorni efekat sesamolina na melanogenezu u ćelijama B16F10 određen in vitro i molekularnim docking analizama. Curr. Pharm. Biotechnol. 2020, 21, 169–178. [CrossRef]
56. Miyahara, Y.; Hibasami, H.; Katsuzaki, H.; Imai, K.; Komiya, T. Sesamolin iz sjemena sezama inhibira proliferaciju inducirajući apoptozu u ljudskim limfoidnim leukemijskim ćelijama molta 4B. Int. J. Mol. Med. 2001, 7, 369–371. [CrossRef]
57. Wu, D.; Wang, X.-P.; Zhang, W. Sesamolin ispoljava anti-proliferativni i apoptotički učinak na ljudske ćelije kolorektalnog karcinoma putem inhibicije JAK2/STAT3 signalnog puta. Cell. Mol. Biol. 2019, 65, 96–100. [CrossRef]
58. Kim, JH; Lee, JK Sesamolin poboljšava aktivnost lize NK ćelija povećanjem ekspresije NKG2D liganada na Burkittovim ćelijama limfoma. Int. Immunopharmacol. 2015, 28, 977–984. [CrossRef]
59. Lee, SE; Lee, JK Sesamolin utiče i na prirodne ćelije ubice i na ćelije raka kako bi stvorio optimalno okruženje za preosetljivost ćelija raka. Int. Immunopharmacol. 2018, 64, 16–23. [CrossRef]
60. Duan, S.; Guo, W.; Xu, Z.; On, Y.; Liang, C.; Mo, Y.; Wang, Y.; Xiong, F.; Guo, C.; Li, Y.; et al. Natural Killer Group 2D receptor i njegovi ligandi u bijegu od raka. Mol. Rak 2019, 18, 29. [CrossRef]
61. Liu, H.; Wang, S.; Xin, J.; Wang, J.; Yao, C.; Zhang, Z. Uloga NKG2D i njegovih liganada u imunoterapiji raka. Am. J. Cancer Res. 2019, 9, 2064–2078.
62. Lee, JK Sesamolin promoviše citolizu i migracijsku aktivnost prirodnih ćelija ubica putem dendritskih ćelija. Arch. Pharm. Res. 2020, 43, 462–474. [CrossRef]
63. Hemalatha, S.; Raghunath, M. Ghafoorunissa Dijetalno susamovo ulje (Sesamum indicum sorta Linn) inhibira oksidativni stres izazvan gvožđem kod pacova. Br. J. Nutr. 2004, 92, 581–587. [CrossRef]
64. Ide, T.; Azechi, A.; Kitade, S.; Kunimatsu, Y.; Suzuki, N.; Nakajima, C.; Ogata, N. Komparativni efekti sjemenki susama koje se razlikuju u sadržaju i sastavu lignana na oksidaciju masnih kiselina u jetri pacova. J. Oleo Sci. 2015, 64, 211–222. [CrossRef] [PubMed]
65. Yang, X.; Liang, J.; Wang, Z.; Su, Y.; Zhan, Y.; Wu, Z.; Li, J.; Li, X.; Chen, R.; Zhao, J.; et al. Sesamolin štiti miševe od gubitka kostiju kod jajnika tako što inhibira osteoklastogenezu i RANKL posredovane NF-KB i MAPK signalne puteve. Front. Pharmacol. 2021, 12, 664697. [CrossRef]
66. Ide, T.; Lim, JS; Odbayar, T.-O.; Nakashima, Y. Komparativna studija sezamovih lignana (sezamin, episesamin i sesamolin) koji utječu na profil ekspresije gena i oksidaciju masnih kiselina u jetri pacova. J. Nutr. Sci. Vitaminol. 2009, 55, 31–43. [CrossRef] [PubMed]
67. Cooney, RV; Custer, LJ; Okinaka, L.; Franke, AA Učinci dijetetskih sjemenki susama na nivoe tokoferola u plazmi. Nutr. Cancer 2001, 39, 66–71. [CrossRef] [PubMed]
68. Frank, J.; Kamal-Eldin, A.; Traber, MG Konzumacija muffina od sezamovog ulja smanjuje izlučivanje metabolita gama tokoferola u urinu kod ljudi. Ann. NY Acad. Sci. 2004, 1031, 365–367. [CrossRef]
69. Champion, M.; Barusrux, S.; Weerapreeyakul, N. Sesamol inducira put mitohondrijalne apoptoze u HCT116 ljudskim ćelijama raka debelog crijeva putem prooksidativnog efekta. Life Sci. 2016, 158, 46–56. [CrossRef]
70. Sato, H.; Aoki, A.; Tabata, A.; Kadota, K.; Tozuka, Y.; Seto, Y.; Onoue, S. Razvoj čvrste disperzije napunjene sezaminom sa -glikozilovanom stevijom za poboljšanje fizičko-hemijskih i nutriceutskih svojstava. J. Funct. Foods 2017, 35, 325–331. [CrossRef]
71. Kongtawelert, P. Proces poboljšanja rastvorljivosti sezamina u vodi. Patent Svjetske organizacije za intelektualno vlasništvo WO 2018/151686, 23. avgust 2018.
72. Wang, C.-Y.; Yen, C.-C.; Hsu, M.-C.; Wu, Y.-T. Samonanoemulgirajući sistemi za isporuku lijekova za poboljšanje rastvorljivosti, permeabilnosti i biodostupnosti sezamina. Molecules 2020, 25, 3119. [CrossRef]
73. Gangur, V.; Kelly, C.; Navuluri, L. Alergija na sezam: rastuća alergija na hranu globalnih razmjera? Ann. Allergy Asthma Immunol. 2005, 95, 4–11. [CrossRef]