Zaštitni efekti Cistanche protiv H2O2/UVB-indukovane degradacije dermalnog fibroblasta kolagena putem Hsa-microRNA-4535-posredovanog TGF /Smad signalizacije Ⅱ
May 06, 2023
DISKUSIJA
U ovoj studiji smo identifikovali dazaštitna uloga cistancheposredovano je slabljenjem hsa-miR- 4535 koji cilja na Smad4, čime se reguliše Smad2/3/4 signalizacija kao i sinteza kolagena u koži izloženoj H2O2/UVB-indukovano oštećenje kože in vitroiin vivo. Naši nalazi se mogu sažeti u šest glavnih tačaka: (1) cistanche atenuirani H2O2-indukovano starenje HS68 ćelija, ali ne i apoptoza pri dozi od 30 µM; (2) H2O2/UVB-indukovanointracelularne i mitohondrijel Formiranje ROS-a i neravnoteža MMP-a su obrnuti nakon togacistanche tretman; (3) cistanche je značajno poboljšao TGF/Smad signalizaciju kao i aktivaciju kompleksa Samd2/3/4 u H2O2-izložene ćelije; (4) povećanje hsa-miR-4535 od strane H2O2/UVB je potisnut u nastavkucistanche tretman; (5) hsa-miR- 4535 je uključen u regulaciju TGF/Smad signalizacije putemciljajući Smad4 na poremećenu sintezu kolagena u H2O2/UVB-izložene ćelije; (6)lokalna primjena cistancheanaleđna koža golamiševi su značajno smanjili UVB-induciranefotostarenje kože,formiranje bora, hiperplazija kože, i oštećenjeTGF/Smad signalnih puteva.

Slika 10. Utjecaj cistanchea na fotooštećenje kože golog miša C57BL6/J izazvano UVB-om. (A) Šematski postupak eksperimenata na životinjama. Dorzalna koža golih miševa C57BL6/J starih četiri sedmice (n=6) bila je izložena UVB zračenju i tretirana cistanche jednom svaka dva dana tokom 8 sedmica (B) Fotografija koja prikazuje stvaranje bora na dorzalnoj koži golih miševa zbog izlaganja UVB zrakama, nakon čega slijedi lokalna primjena cistanchea.
Kliknite ovdje da saznate Cistanche tretman za smanjenje Photodamage
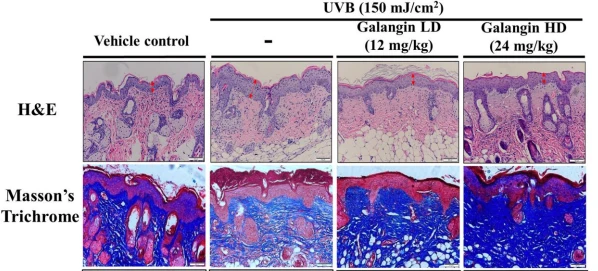

Slika 11. Lokalna cistanche aplikacija slabi UVB-indukovanohiperplazija kožei degradaciju kolagena u dorzalnoj koži C57BL6/J golih miševa. Tkiva kože su serijski isječena i obojena H&E, Massonovim trihromom i imunohistohemijski na p-Smad2/3 Smad4 i -gal. H&E bojenje je pokazalo debljinu epiderme. Dvostrane crvene strelice ukazuju na zadebljanje epiderme. Massonovo trihromsko bojenje pokazalo je sadržaj kolagenih vlakana u dermalnim slojevima. Kolagenska vlakna izgledaju plavo. LD, mala doza; HD, visoka doza.

cistanchenavodno je pokazao anti-apoptotička i antioksidativna svojstva u različitim ćelijama kao što su keratinociti i kardiomiociti [13, 39, 40]. Oralna primjena cistanchea je djelotvorno potisnula streptozotocinom izazvanu ozljedu jetre kod dijabetičkih štakora smanjenjem mitohondrijalnog oksidativnog oštećenja i povećanjem antioksidantne signalizacije Nrf2 [13, 41]. Druge studije su pokazale da je cistanche ublažio hepatotoksičnost izazvanu ciklofosfamidom i nefrotoksičnost izazvanu cisplatinom tako što je ublažio oksidativni stres i upalu [42, 43]. Izloženost dermalnih fibroblasta UVB ili H2O2 dovodi do akumulacije ROS-a u mitohondrijima, što dovodi do fragmentacije mitohondrija i ćelijskog starenja [44]. Prethodna studija je pokazala da fragmentirane mitohondrije ometaju proizvodnju kolagena [45]. Naša studija je pokazala da cistanche posjeduje sposobnost uklanjanja radikala kako bi spriječio neravnotežu potencijala mitohondrijske membrane izazvane ROS-om i akumulaciju ROS-a u UVB i H2O2-indukovanim ćelijama. (Slika 3A–3C). Nedavne studije su objavile da su dermalni fibroblasti odgovorni za organizaciju okruženja bogatog ECM-om,
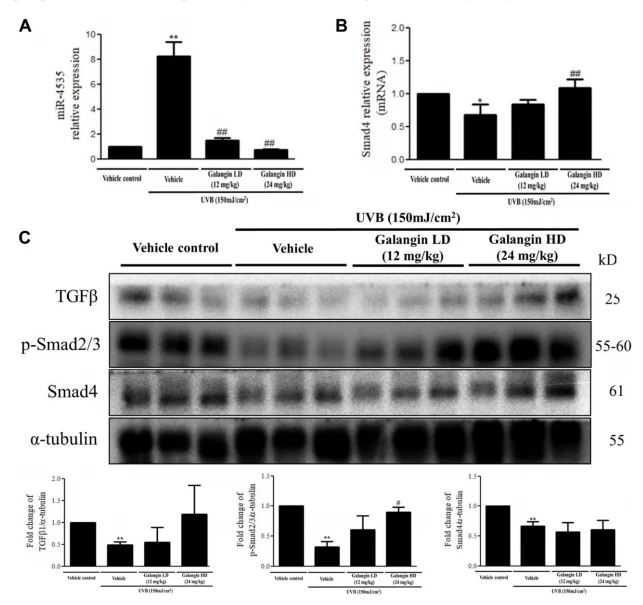
Slika 12. Efekti cistanchea na TGF /Smad signalizaciju i ekspresiju hsa-miR-4535 kod miševa ozračenih UVB zrakama. (A i B) Nivoi mRNA hsa-miR-4535 i Smad4 iz dorzalne kože miševa izloženih UVB-u detektovani su qRT-PCR. (C) Nivoi proteina TGF, p-smad2/3 i Smad4 u tkivima dorzalne kože otkriveni su Western blottingom. -tubulin je korišten kao kontrola opterećenja. Podaci su predstavljeni kao srednja vrijednost ± SD. Prikazana je kvantifikacija rezultata; *P < 0.05, **P < 0.01 u odnosu na kontrolnu grupu vozila; #P < 0,05, ##P < 0,01 u odnosu na UVB plus grupu vozila.
pretežno se sastoji od kolagena tipova I i III [46]. Homeostaza kolagena tipova I i III je suštinski odgovorna za održavanje strukturne i mehaničke podrške za kožu [47]. Novi dokazi sugeriraju da se obilje ROS stvara tokom starenja, što rezultira progresivnim gubitkom kolagenskih snopova u dermalnim slojevima i na taj način doprinosi stvaranju bora zbog poremećenog TGF/Smad puta i povećane ekspresije MMP [48, 49].cistanche-posredovanoaktivacija TGF/Smad signalizacije proizvodi kolagen koji održava integritet kože. Međutim, ima različite efekte na ćelije raka; kod raka jetre,cistanche-tretmaninhibirao proliferaciju HepG2 ćelija aktivacijom TGF/Smad signalizacije [50]. Nasuprot tome, cistanche je inhibirao TGF/Smad signalizaciju, kao i inaktiviran Smad3, što je rezultiralo inhibicijom rasta ćelija raka prostate i pankreasa [51]. Međutim, uloga cistanche u TGF/Smad signalizaciji ukožni dermalni fibroblastiostao nepoznat. Ovdje smo primijetili da cistanche pojačava regulaciju ekspresije COL1A1 i COL3A1 koja je smanjena u stanicama tretiranim H2O2/UVB kroz aktivaciju TGF/Smad signalizacije (Slike 4A-4C, 8E, 9A). Štaviše, indukcija MMP-1 H2O2/UVB je poništena nakon tretmana cistanche (Slika 4A, 9A). Naši nalazi pokazuju da cistanche štiti dermalne fibroblaste od oštećenja izazvanih H2O2/UVB aktiviranjem TGF/Smad signalizacije i induciranjem proizvodnje kolagena.

Razvoj kolagena u dermisu kožeje složen fiziološki proces, a pokazalo se da regulacija posredovana mikroRNA doprinosi remodeliranju i organizaciji ECM-a [23, 52, 53]. Kolagen, elastin i hijaluronska kiselina (HA) su tri glavna proteina koji održavaju integritet kože. Nagomilani dokazi sugeriraju da je nekoliko mikroRNA uključeno u dermalno starenje kroz ECM regulaciju. miR-181a je povećana u starim ljudskim dermalnim fibroblastima i omogućila je kolagenu XVI da modulira komponente ECM-a [54]. Zanimljivo je da bi visoka ekspresija miR-23a-3p mogla izazvati dermalno starenje direktnom supresijom hijaluronan sintaze 2, jednog od izoenzima transmembranske HA sintaze koji sintetišu HA [21]. Nedavno je objavljeno da različita prirodna jedinjenja ublažavaju starenje kože putem mikroRNA regulacije [55–57]. Nadalje, cistanche je navodno bio uključen u regulaciju mikroRNA kod holangiokarcinoma i hepatocelularnog karcinoma i uzrokovao supresiju rasta stanica i metastaza [58, 59]. Do sada nijedna studija nije identificirala molekularni mehanizam, kao što je regulacija mikroRNA, ucistanche-treatedćelije dermalnih fibroblasta ljudske kože. Ovdje smo analizirali profile niza mikroRNA kako bismo identificirali nekoliko mikroRNA koje su se razlikovale između kontrolne i 30 µMcistanche-treatedgrupe (slika 5A). Koristeći baze podataka miRDB i TargetScanHuman, predvidjeli smo Smad4 kao hsa-miR-4535mRNA meta (slika 5B). Ekspresija hsa-miR-4535 je smanjena nakon tretmana cistanche u ćelijama izazvanim H2O2/UVB (Slika 6C, 9B). Nasuprot tome, ekspresija njegove mete, mRNA-Smad4, bila je značajno inhibirana u ćelijama izloženim H2O2/UVB i povećana nakon tretmana cistanche (Slika 6D, 9C). Različite studije su pokazale da ROS djeluje kao intermedijarni stimulirajući faktori transkripcije izazvane stresom, kao što su p53, NF-κB i HIF [60]. Stoga smo zaključili da se određene miRNA mogu modulirati kroz regulaciju ovih transkripcijskih faktora. Koristeći bazu podataka vezanih za faktor transkripcije (PROMO), identifikovali smo da postoji jedan navodni element za vezivanje p53 na hsa-miR-4535 promotoru. Naša buduća studija će se fokusirati na regulaciju transkripcije p53 u hsa-miR-4535 promotoru. Nadalje, H2O2-indukovana degradacija kolagena nije mogla biti oslabljena u hsa miR-4535 prekomjerno eksprimiranim ili si-Smad4 transficiranim ćelijama čak i nakon tretmana cistanche (Slika 8C, 8E). Ovi nalazi dalje potvrđuju učešće hsa-miR- 4535 u regulaciji sinteze kolagena ciljanjem na Smad4.

Slika 13. Šematski dijagram mehanizma cistanche djelovanja. cistanche poboljšava puteve sinteze TGF/Smad kolagena smanjenjem H2O2-indukovane has-mikroRNA-4535 kako bi se poboljšalo fotostarenje u dermalnim fibroblastima ljudske kože. Skraćenice: ECM: ekstracelularni matriks; TGF : transformirajući rastući faktor beta; T RI: TGF receptor tip I; T RII: TGF receptor tip II.
Zaključno, naši nalazi su pokazali da cistanche štiti od stvaranja ROS-a izazvanog H2O2/UVB, neravnoteže MMP, ćelijskog starenja i degradacije kolagena u ljudskim dermalnim fibroblastima. Dermo zaštitni efekti cistanchea bili su povezani sa inhibicijom hsa-miR-4535 i aktivacijom kompleksa Smad2/3/4 radi poboljšanja sinteze kolagena. Aktivacija kompleksa Smad2/3/4 je regulirana hsa-miR-4535 kroz vezivanje za Smad4-3′-UTR. Stoga, zaštitni mehanizam cistanchea od oštećenja kože izazvanog H2O2/UVB dermalnim oštećenjem može uključivati inhibiciju sinteze Smad4/kolagena pomoću hsa-miR- 4535
MATERIJALI I METODE
Ćelijske kulture i tretmani
HS68 humani dermalni fibroblasti dobijeni su iz Centra za prikupljanje i istraživanje bioresursa (BCRC, Hsinchu, Tajvan) i održavani u Dulbecco-ovom modificiranom esencijalnom mediju (DMEM, Thermo Fisher Scientific, MA, SAD) koji sadrži 10 posto fetalnog goveđeg seruma (Invitrogen, CA, SAD ), 2 mM L-glutamina (Sigma-Aldrich, MO, SAD), 100 U/mL penicilina (Sigma-Aldrich) i 100 ug/mL streptomicina (Sigma Aldrich) na 37 stepeni i 5 posto CO2. Da bi se procijenio učinak cistanchea na oštećenje ćelija izazvano H2O2-, HS68 ćelije su tretirane sa 200 μM H2O2 tokom 1 h, a zatim zajedno sa cistancheom (282200, Sigma-Aldrich) tokom 23 sata. Ćelije su isprane PBS-om i stavljene u 1 mL svježeg PBS-a prije izlaganja UVB-u. Za UVB zračenje, ćelije su izložene unakrsnom povezivaču (CX-2000, Upland, Kalifornija, SAD) i UVB sijalicama intenziteta od 40 mJ/cm2, a zatim tretirane cistancheom.
MTT testovi
Vijabilnost HS68 ćelija nakon tretmana je izmjerena korištenjem MTT testa. HS68 ćelije su posađene u 96-pločice i tretirane sa 200 μM H2O2 tokom 1 h ili ozračene sa 40 mJ/cm2 UVB, a zatim inkubirane sa različitim koncentracijama cistanhe (10, 20, 30 μM) tokom 23 h. Nakon 24 h, podloga za kulturu je zamijenjena sa 100 μL MTT (3-(4,5-dimetiltiazol-2- il)-2,5-difenil tetrazolijum bromid) rastvor (0,5 mg/mL; 5 mg/mL osnovni rastvor u PBS-u je razblažen medijumom za kulturu do 0,5 mg/mL) tokom 4 h na 37 stepeni. Potom je purpurno obojeni formazan rastvoren u 100 μL dimetil sulfoksida (DMSO) i optička gustoća na 570 nm je izmerena spektrofotometrom (Bio-Rad, Hercules, Kalifornija, SAD).
Transfekcija tranzijenti
Microarray analiza
Luciferazni reporterski test
Ćelije su ko-transficirane sa Smad4-3′-UTR-WT ili Smad4-3′-UTR-MT reporterskim konstruktima divljeg tipa i mutiranom luciferazom, odnosno plazmidima luciferaze interne kontrole. Nakon transfekcije, aktivnosti luciferaze su detektovane Dual-Glo Luciferase Assay System (Promega, Sunnyvale, CA, USA) prema uputama proizvođača. Ploče su očitane na Reporter Microplate Luminometru (Turner Biosystems, Sunnyvale, CA, USA). Relativna aktivnost luciferaze je normalizovana na aktivnost Renilla luciferaze.
Western blot analiza
Ćelije su isprane upotrebom 1× fiziološkog rastvora puferovanog fosfatom (PBS) i lizirane u puferu za lizu (50 mM Tris-baze (pH7,5), {{10}},5 M NaCl, 1 mM EDTA (pH 8,0), 1 mM -merkaptoetanola, 1 posto NP-40, 1 posto glicerola i koktel tablete inhibitora proteaze (Roche Molecular Biochemicals, Gornja Bavarska, Njemačka) 30 minuta na ledu, a zatim centrifugirano na 12,000 × g 10 min na 4 stepena Supernatanti su sakupljeni u epruvete za mikrocentrifugu od 1,5 mL. Koncentracija proteina u ovim supernatantima je određena Bradfordovom metodom (Bio-Rad, Hercules, CA, USA). koji sadrže jednake količine proteina (20 ug) razdvojeni su putem elektroforeze natrijum dodecil sulfat-poliakrilamidnog gela sa gradijentom od 6 do 12 procenata (SDS-PAGE), a zatim prebačeni na membrane od poliviniliden difluorida (PVDF) (Millipore, Bedford, MA, SAD). Membrane su blokirane puferom za blokiranje (5 posto nemasnog suhog mlijeka, 20 mM Tris-HCl, pH 7,6, 150 mM NaCl i 0,1 posto Tween 20) 1 h na sobnoj temperaturi. Zatim su membrane inkubirane s primarnim antitelima (1: 1,000 razrjeđenje) protiv TGF 1 (sc-31609, Santa Cruz, Kalifornija, SAD), p-smad2/3 (sc- 11769, Santa Cruz), Smad4 (sc{{ 50}}, Santa Cruz),COL1A1 (sc-28657, Santa Cruz), COL3A1 (sc-271249,Santa Cruz), p16 (10883-1-AP, Proteintech), p21 (sc{ {60}}, Santa Cruz), MMP-1 (sc-1731, Santa Cruz), GAPDH (sc-32233, Santa Cruz) i Histon H1 (sc-10806 , Santa Cruz) preko noći na 4 stepena. Zatim su inkubirani sa odgovarajućim sekundarnim antitelima (1:80,000 razblaživanje), antizečjim (A0545), antimišjim (A9044) ili antikozjim (A5420) IgG (Santa Cruz Biotechnology) 1 h na sobnoj temperaturi. Imunoblotovi su detektovani sa supstratom sa pojačanom hemiluminiscencijom (ECL) peroksidaze rena (HRP) (Millipore) korišćenjem ImageQuant LAS4000 mini (GE Healthcare Life Sciences, Little Chalfont, UK).
Ekstrakcija nuklearnog proteina
Ekstrakcija RNK i qRT-PCR
Ukupna RNK ekstrahirana je korištenjem Direct-zol™ RNA MiniPrep komercijalnog kompleta (Zymo Research Corporation, CA, USA) prema protokolu proizvođača [65, 66]. miRNA su reverzno transkribovane u cDNK pomoću kompleta za sintezu miRNA cDNK (Takara, Shiga, Japan) kao što je prethodno opisano [16, 67]. Ekspresija hsa-miR-4535 i Smad4 detektirana je PCR-om u realnom vremenu u LightCycler 96 Systems (Roche, Basel, Švicarska) korištenjem standardnog LightCycler 480 SYBR Green I Master protokola. 10 μL PCR reakcija uključivala je 2 μL cDNA, 5 μL 2× SyberGreen PCR miksa, 0,5 μL prednjeg prajmera (10 μM), 0,5 μL reverznog prajmera (10 μM) i 2 μL ddH2O. Sve reakcije su izvedene u tri primjerka. Za detekciju mRNA, za svaki gen je određen prag ciklusa (Ct), a ekspresija svakog gena u odnosu na GAPDH izračunata je kao 2ΔCt gdje je ΔCt=(Cttarget gen – CtGAPDH). Za detekciju miRNA, Ct je određen za svaki gen i ekspresija svakog gena u odnosu na onu U6 rRNA je izračunata kao 2ΔCt gdje je ΔCt=(Cthsa-miR-4535 – CtU6 rRNA). Prednji (F) i reverzni (R) prajmeri korišćeni za detekciju ekspresije miRNA i mRNA su: hsa-miR-4535 (3′-CAGGG TCGGUCCA5′); human-Smad4 (F′-TGACCCAAA CATCACCTTCA, R′- ATACGTGGACCCTTCTG GA); ljudski-GAPDH (F′-ACCCAGAAGACTGTGGA TGG, R′-TTCAGCTCAGGGATGACCTT); miš-Smad4 (′'-GTGGAAGCCACAGGAATGTT, R′-CCCA CTGAAGGACATTCGAT); miš-GAPDH (F′-CCTT CCACAATGCCAAAGTT, R′-GGGTGTGAACCA CGAGAAAT).
Imunofluorescentna analiza
Detekcija ukupnog i mitohondrijalnog ROS-a
Mjerenje potencijala mitohondrijske membrane (MMP)
Bojenje aneksinom V i propidijum jodidom (PI) protočnom citometrijom
Apoptotične ćelije su obojene Aneksinom V i PI, a zatim detektovane protočnom citometrijom koristeći bojenje. Ukratko, HS68 ćelije su tretirane različitim koncentracijama (50, 100, 200, 300 i 400 µM) H2O2 tokom 24 h. Ćelije su zatim sakupljene tripsinizacijom i obojene pomoću kompleta za otkrivanje apoptoze Aneksina V i PI (BD Biosciences, San Jose, CA, SAD) prema protokolu proizvođača. Protočna citometrija je izvedena u fluorescentno aktiviranom sortiranju ćelija (FACS) Core Facility, Kineski medicinski univerzitet, Tajvan, koristeći FACS Canto™ sistem (BD Biosciences).
Bojenje galaktozidazom (SA- -gal) povezano sa starenjem
Životinjski modeli
Histološki pregled
Uzorci biopsije kože fiksirani su u 10 posto formalina i rehidrirani korištenjem gradijenta alkohola (100 posto, 95 posto i 75 posto) najmanje 24 h. Zatim su uzorci ugrađeni u parafinski vosak i izrezani na 0,5 μm debljine. Ugrađeni komadi kože obojeni su hematoksilinom i eozinom (H&E) i Massonovim trihromom (MT) kako bi se procijenila struktura kože i sadržaj kolagenih vlakana, respektivno. Slike su snimljene svetlosnim mikroskopom (Olympus).
Imunohistohemija
Statistička analiza
DOPRINOSI AUTORA
Konceptualizacija: WWK, CYH, JJL; Pribavljanje sredstava: JJL; Istraga: YTN; Metodologija: SCN, YTN; Administracija projekta: YTN; Resursi: WWK, CYH, JJL; Nadzor: WWK, JSL; Validacija: CJC; Writing - Original Draft Priprema: YTN; Pisanje - pregled i uređivanje: SCN, WWK, VVP. WWK* i CYH* su podjednako doprinijeli ovom radu. SUKOB INTERESA
Autori izjavljuju da nema sukoba interesa u vezi sa ovom studijom.
FINANSIRANJE Ova studija je podržana grantovima Ministarstva nauke i tehnologije (MOST 109-2320- B-039-038-MY3) i Kineskog medicinskog univerziteta (CMU110-MF-39).
REFERENCE
1. Farage MA, Miller KW, Elsner P, Maibach HI. Unutrašnji i ekstrinzični faktori ustarenje kože: pregled. Int J Cosmet Sci. 2008; 30:87–95. https://doi.org/10.1111/j.1468-2494.2007.00415.x PMID:18377617 2. Mauviel A. Transformirajuća signalizacija faktora rasta-beta u koži: unakrsni razgovor stromale i epitela. J Invest Dermatol. 2009; 129:7–9. https://doi.org/10.1038/jid.2008.385 PMID:19078982
3. Naylor EC, Watson RE, Sherratt MJ. Molekularni aspektistarenje kože. Maturitas. 2011; 69:249–56. https://doi.org/10.1016/j.maturitas.2011.04.011 PMID:21612880
4. Kähäri VM, Saarialho-Kere U. Matrix metaloproteinases in skin. Exp Dermatol. 1997; 6:199–213. https://doi.org/10.1111/j.1600-0625.1997.tb00164.x PMID:9450622
5. Kim HH, Lee MJ, Lee SR, Kim KH, Cho KH, Eun HC, Chung JH. Povećanje bora kože izazvanog UV zračenjem infracrvenim zračenjem kod miševa bez dlake. Mech Aging Dev. 2005; 126:1170–77. https://doi.org/10.1016/j.mad.2005.06.003 PMID:16118013
6. Baumann L. Starenje kože i njeno liječenje. J Pathol. 2007; 211:241–51. https://doi.org/10.1002/path.2098 PMID:17200942
7. Massagué J. TGF signalizacija u kontekstu. Nat Rev Mol Cell Biol. 2012; 13:616–30. https://doi.org/10.1038/nrm3434 PMID:22992590
8. Murphy AM, Wong AL, Bezuhly M. Modulacija signalizacije angiotenzina II u prevenciji fibroze. Fibrogeneza popravka tkiva. 2015; 8:7. https://doi.org/10.1186/s13069-015-0023-z PMID:25949522
9. Tu Y, Quan T. Oksidativni stres i starenje vezivnog tkiva ljudske kože. Kozmetika. 2016; 3:28. https://doi.org/10.3390/cosmetics3030028 10. Chung JH, Youn SH, Kwon OS, Eun HC, Kim KH, Park KC, Cho KH, Youn JI. Povećana proliferacija i sinteza kolagena ljudskih dermalnih fibroblasta u hronično fotooštećenoj koži. Photodermatolwww.aging-us.com 25361 STARENJE Photoimmunol Photomed. 1996; 12:84–89. https://doi.org/10.1111/j.1600-0781.1996.tb00180.x PMID:8897594
Pitajte za više:
E-pošta:wallence.suen@wecistanche.com whatsapp: plus 86 15292862950