

Dio 2: Identifikacija dopaminergičkih neurona koji mogu i uspostaviti asocijativnu memoriju i akutno prekinuti njenu ekspresiju ponašanja
Mar 19, 2022
Kontakt:joanna.jia@wecistanche.com/ WhatsApp: 008618081934791
Dendrogram analiza. Dendrogrami neurona su 2D skice 3D neuronskih rekonstrukcija od Eichler et al. (2017). Kao "linearizirane", spljoštene verzije morfološki složenih neurona, dendrogrami su kompaktne vizualizacije koje služe za prikaz prostorne distribucije sinapsi. Detalje algoritma za crtanje dendrograma opisali su Strauch et al. (2018). Ukratko, dendrogrami su topološki ispravne neuronske skice s dominantnom primarnom granom nacrtanom kao ravna linija, i kraćim bočnim granama koje su uklonjene pod stereotipnim uglovima i usmjerene prema gore i dolje na naizmjenično način kako bi se izbjeglo preklapanje. Nacrtani su tako da su dužine kablova i položaji sinapsi približno tačni. Male modifikacije za poboljšanje čitljivosti uključuju automatsko preuređenje simbola sinapse kako bi se riješio nered i preklapanje (Strauch et al., 2018).
Za analizu sinaptičke organizacije, izračunali smo matricu udaljenosti (sinapse) koja sadrži geodetske udaljenosti (tj. udaljenost kao "dužinu kabla" duž neurona) između lokacija svih sinapsi na neuronu. Geodetske udaljenosti su izračunate kao euklidske udaljenosti u 3D koordinatama rekonstruisanog neurona prelaskom duž ogranaka neurona. Klasterizirali smo lokacije sinapse pomoću klasteriranja podjele analize (DIANA) (Kaufman, 2005.) koji radi na matrici geodetske udaljenosti. Na osnovu analize rezultata siluete, postavili smo broj klastera po neuronu na 10. Klasteri koji nisu sadržavali sve četiri interesne klase sinapsa (KC!DAN-i1, DAN-i1!KC, DAN-i1!MBON-i1 lijevo, DAN-i1!MBON-i1 desno) su uklonjeni iz analize. Za svaki klaster, centralna tačka je definirana kao najcentralnija sinapsa klastera kao što je određeno podjelom oko klastera medoida (PAM sa k=1 klasterom) (Kaufman, 2005) na osnovu geodetskih udaljenosti sinapsi unutar klastera. Konačno, odredili smo geodetske udaljenosti između svih sinapsi i centralne tačke klastera.

Cistanche može poboljšati pamćenje
Dizajn eksperimenta i statistička analiza. Korišteni su dvostrani neparametarski testovi, a statističke pretpostavke za ove testove su ispunjene u cijelom. Kada je izvršeno više poređenja unutar jedne analize, primijenjena je Bonferroni-Holmova korekcija kako bi se stopa greške u cijelom eksperimentu zadržala na 5 posto (Holm, 1979). Svi izvršeni statistički testovi i njihovi rezultati prikazani su u proširenim podacima na slici 1-1 zajedno sa izvornim podacima.
Za sve eksperimente ponašanja, vrijednosti su upoređene u više grupa sa Kruskal-Wallisovim testovima. U slučaju značajnosti, naknadna poređenja u paru koristila su Mann-Whitney U testove. Da bi se provjerilo da li se vrijednosti date grupe razlikuju od nule, korišteni su testovi predznaka jednog uzorka.
Eksperimenti na slikama 1, 6C–F i 8 slijedili su dizajn s dvije grupe, upoređujući dva uslova testiranja za eksperimentalni genotip. Obje grupe su upoređene sa Mann-Whitney U testom, a njihova značajnost od nule testirana je testovima znaka jednog uzorka.
Eksperimenti na slikama 6A, B slijedili su dizajn od šest grupa, sa tri genotipa (eksperimentalni genotip koji izražava ChR2-XXL, upravljački i efektor kontrole) i dva testna uslova. Prvo je izvršen Kruskal-Volisov test u svim grupama. U slučaju značajnosti, izvršili smo par Mann-Whitney U-testova između eksperimentalnog genotipa i svake od genetičkih kontrola istog testnog stanja, kao i između testnih uslova za eksperimentalni genotip (ukupno pet Mann-Whitney U testova) . Svaka grupa je testirana na njen značaj od nule testovima sa jednim uzorkom.
Eksperimenti na slici 7 pratili su dizajn od tri grupe sa životinjama eksperimentalnog genotipa koje eksprimiraju ChR2-XXL. Nakon inicijalnog Kruskal-Wallis testa u svim grupama, izveli smo u paru Mann-Whitney U testove za grupu bez izlaganja plavom svjetlu nakon treninga i obje druge grupe. Za svaku grupu testirana je značajnost od nule (testovi sa jednim uzorkom).
Eksperimenti na slikama 9 i 10 slijedili su dizajn od četiri grupe sa životinjama eksperimentalnog genotipa koje eksprimiraju ChR2-XXL. Nakon inicijalnog Kruskal-Wallisovog testa u svim grupama, izveli smo uparene Mann-Whitney U testove između grupa koje su imale upareni i neparni trening u okviru istog testnog uslova, i između testnih uslova za datu vrstu treninga (ukupno četiri Mann-Whitney U testovi). Nisu obavljeni testovi znakova jednog uzorka.
Predstavljamo podatke o ponašanju kao dijagrame okvira sa medijanom kao srednjom linijom i 25 procenata /75 procenata i 10 procenata /90 procenata kao granicama kutije i brkovima, respektivno. Outliers se ne prikazuju. Eksperimentatori su bili slijepi za genotip i u pogledu odsustva ili prisutnosti nagrade za šećer tokom testa opoziva, ako je bilo primjenjivo. Veličine uzoraka (biološke replikacije) odabrane su na osnovu prethodnih studija koje su otkrile umjerene do blage veličine efekta (Paisios et al., 2017; Saumweber et al., 2018) i prikazane su u legendama slika. Veličina uzorka od n =1 je uključena; 20 životinja oba spola za sve eksperimente s urođenim preferencijama i 2 20 životinja (20 za svaku recipročno obučenu grupu) oba spola za sve eksperimente učenja.
Da bismo uporedili brojeve sinapsa između ipsilateralne i kontralateralne strane neurona MBON-i1 (vidi sliku 3A), testirali smo njihovu distribuciju koristeći x2 testove, odvojeno za sinapse KC!MBON-i1 i sinapse DAN-i1!MBON-i1. Da bismo uporedili udaljenosti sinapsi do centra njihove odgovarajuće centralno-okružne strukture na DAN-i1 neuronu (vidi sliku 4C,D), izveli smo Kruskal-Wallis testove za sve tipove sinapsi, kao i Mann-Whitney U u paru. testovi između svih tipova sinapsa (ukupno 6 Mann-Whitney U-testova), odvojeno za lijevi i desni DAN-i1 neuron.
Rezultati
Prostorni raspored sinapsi u DAN-KC-MBON matrici
Nedavna rekonstrukcija kompletnog kruga tijela gljive elektronskim mikroskopom omogućila je povezivanje DAN-ova, KC-ova i MBON-ova na osnovu broja kemijskih sinapsi između njih (Eichler et al., 2017.). Aksonalne grane


Slika 3. Organizacija sinaptičkih ulaza u neuron MBON-i1. Broj KC!MBON-i1 i DAN-i1!MBON-i1 sinapsi za svaki MBON-i1 neuron, odvojenih hemisferom. Oba MBON-i1 neurona imaju više sinapsi s tim KC-ovima i taj DAN-i1 se nalazi u hemisferi kontralateralno od tijela njihove ćelije. *Značajni x2 testovi (p, 0.05, ispravljeno prema Bonferroni-Holmu). Podaci su od Eichler et al. (2017). B, Polushematski pregled distribucije sinapsi od ipsilateralne i kontralateralne hemisfere do MBON-i1. KC i oba DAN-i1 neurona formiraju više sinapsi sa kontralateralnim delom MBON-i1 nego sa njegovim ipsilateralnim delom. C, Distribucija broja zrelih KC-a koji formiraju naznačeni broj sinapsi sa levim ili desnim MBON-i1 neuronom. KC iz lijeve hemisfere formiraju manje sinapsi sa lijevim nego desnim MBON-i1 neuronom (lijevo). KC iz desne hemisfere, obrnuto, formiraju više sinapsi sa lijevom nego desnom MBON-i1 (desno). S obzirom na to da KC ne prelaze srednju liniju, sve sinapse koje, na primer, desni MBON-i1 formiran sa KC-ovima iz leve hemisfere, nalaze se na delu MBON-i1 kontralateralno u odnosu na telo ćelije. D, Uprkos činjenici da MBON-i1 neuroni primaju manje ulaza od KC-a hemisfere ipsilateralno u odnosu na svoje ćelijsko tijelo nego od kontralateralne hemisfere, oba MBON-i1 neurona primaju informacije o punom prostoru KC ulaza, u bilo kojoj hemisferi. Da bi se odredio odnos između MBON-i1 i senzornog inputa koji se projektuje na KC, ukupni ulaz koji MBON-i1 prima od KC-a koji zauzvrat primaju svoj ulaz od neurona uniglomerularne olfaktorne projekcije (PNs) (bijeli i tamno sivi), multiglomerularni mirisni PN-ovi (svetlo sivi) i nefaktorni PN-ovi (crni) uzeti su u obzir za izračunavanje matričnog proizvoda odgovarajućih PN!KC i KC!MBON-i1 sinapsi. Ovo je urađeno odvojeno za MBON-i1 lijevo i njegove veze na desni (tj. kontralateralni) KC (gore lijevo), i one na lijevo (tj. ipsilateralni) KC (gore desno), i prema tome za MBON-i1 desno ( dno). Podaci su zasnovani na Eichler et al. (2017). Svi statistički testovi i njihovi rezultati se izvještavaju zajedno sa izvornim podacima na slici proširenih podataka 1-1.
pojedinačni DAN-ovi i dendritske grane pojedinačnih MBON-ova su svaki ograničeni na specifične kompartmente i preklapaju se unutar njih zajedno sa snopovima KC aksona (larve: Pauls et al., 2010;
Eichler et al., 2017; Saumweber et al., 2018; Eschbach et al., 2020; odrasli: Aso et al., 2014a; Takemura i dr., 2017.). DAN-i1 inervira i-odjeljak medijalnog režnja tijela pečurke (ponekad se naziva gornji prst medijalnog režnja). Rekonstrukcija je otkrila da ne samo da signalizira KC, već zapravo ima dva glavna cilja: KC i MBON-i1 (Slika 2A, B) (Eichler et al., 2017). U skladu s tim, MBON-i1 ima dva glavna partnera uzvodno: KC i DAN-i1. Slična organizacija DAN-ova i MBON-ova nalazi se u svim dijelovima tijela gljive (larve: Eichler et al., 2017; odrasli: Takemura et al., 2017). Konkretno, za DAN-i1, 75 procenata i 21 procenat njegovih izlaznih sinapsi u telu pečurke povezuje se sa KC i MBON-i1, respektivno, a MBON-i1 prima; 74 procenata i 14 procenata njegovih ulaznih sinapsi u telu pečurke od KC i DAN-i1, respektivno (Eichler et al., 2017; Saumweber et al., 2018). Iako su takve analize informativne na mnogo načina, one ne uzimaju u obzir prostorni raspored sinapsi duž neurona. Da bismo rasvijetlili ovaj raspored u i-kompartmentu, koristimo dendrograme koji nam omogućavaju da prikažemo složeni, 3D Gestalt neurona kao 2D skicu koja bilježi njegovu granastu strukturu, čuva dužine grana i identificira lokaciju sinapse duž grana ( Strauch et al., 2018). Takve detaljne analize premašuju rezoluciju kojom se trenutno može manipulirati neuronima kod životinja koje se slobodno ponašaju (Aso i Rubin, 2020). Ipak, oni nude uvid u stvarnu složenost neurona koji se proučavaju, kao i na računske implikacije motiva kola čiji su dio (vidi i Bilz et al., 2020). Iz naših analiza ističemo sljedeće tačke (slike visoke rezolucije DAN-i1 i MBON-i1 neurona iz obje hemisfere kao i svih zrelih KCs dostupni su na slikama proširenih podataka. 2-1, 2-2 , i 2-3, respektivno):
• I DAN-i1 i MBON-i1 imaju masivne interhemisferne veze. Ovo je izvanredno s obzirom na to koliko se malo interhemisfernih preslušavanja inače uočava duž uzlaznih puteva, uključujući KC (slika 2A) (Berck et al., 2016.; Eichler et al., 2017.; Saumweber et al., 2018.; Thum i Gerber, 2019. ). Konkretno, oba DAN-i1 neurona su recipročno povezana sa većinom zrelih KC, u obje hemisfere. Štaviše, DAN-i1 neuroni obezbeđuju izlaz za oba neurona MBON-i1, ipsilateralno i kontralateralno (slika 2E; za slike visoke rezolucije oba DAN-i1 neurona, pogledajte proširene podatke na slici 2-1). Ovo implicira da svaki MBON-i1 neuron, zauzvrat, prima ulaz od oba DAN-i1 neurona, ipsilateralno i kontralateralno (slika 2F; za slike visoke rezolucije oba MBON-i1 neurona, pogledajte proširene podatke na slici {{28). }}). Isto tako, neuroni MBON-i1 primaju ulaz od većine zrelih KC-a, u obje hemisfere (Eichler et al., 2017), i pružaju izlaz izvan tijela gljive, također u obje hemisfere. Dendrogrami preciznije otkrivaju da su izlazi iz DAN-i1 na MBON-i1 neuron ipsilateralne i kontralateralne hemisfere pomiješani, kao i ulazi u MBON-i1 iz DAN-i1 neurona ipsilateralne i kontralateralne hemisfere (sl. 2E,F). Značajno je da MBON-i1 nije hemisferno simetričan u smislu broja sinapsi koje prima u tijelu pečurke: oba neurona MBON-i1 primaju više sinapsi u hemisferi kontralateralno u odnosu na njihova ćelijska tijela (slike 2F, 3A, B); ipak, oba neurona MBON-i1 primaju informacije o kompletnom senzornom ulaznom prostoru u bilo kojoj hemisferi (sl. 3C,D).

cistanche pharma special
• Obrasci grananja i DAN-i1 i MBON-i1 strukturirani su u nekoliko glavnih regija. Za DAN-i1 mogu se identifikovati tri takva glavna regiona. Počevši od tela ćelije, u prvom regionu, DAN-i1 prima podatke od svojih partnera izvan tela pečurke (označeno sa 1 na slici 2C–E) (Eschbach et al., 2020), dok druga i treća regija poklapaju se sa i-kompartmentom ipsilateralnog i kontralateralnog tela pečurke, respektivno (označeno sa 2 i 3 na sl. 2C–F). U telu pečurke, DAN-i1 je recipročno povezan sa KC-ovima i obezbeđuje izlaz prema MBON-i1. Primarni neurit MBON-i1 prelazi srednju liniju, a neuron zatim inervira i-odjeljak tijela gljive kontralateralno u odnosu na tijelo svoje ćelije (regija označena sa 3 na sl. 2C–F); ovdje, uglavnom prima ulaz od KC-a i DAN-i1. Zatim, MBON-i1 prelazi nazad preko srednje linije i na isti način inervira tijelo gljive ipsilateralno u odnosu na tijelo svoje ćelije (regija označena sa 2 na sl. 2C–F). Osim toga, MBON-i1 ima nekoliko malih grana u obje hemisfere koje se povezuju s partnerima blizu, ali neposredno izvan tijela gljive.
• Unutar ovih regija, podjele nalik na odjeljak koje su prepoznatljive u DAN-i1 i u MBON-i1 neuronima obje hemisfere ne mogu se identificirati (slika 2E,F; prošireni podaci, slike 2-1, {{7 }}). Međutim, za DAN-i1 neurone, očigledne su višestruke, bočno "idiosinkratične" sinapse bogate centralno okružujuće strukture (slika 4). Prema njihovom centru nalaze se svi gore pomenuti tipovi sinapsi DAN-KC-MBON matrice, dok njihovo okruženje sadrži skoro isključivo KC!DAN sinapse (slika 4). Značajno je da bilo koji dati KC obično uspostavlja sve svoje sinapse u samo jednoj ili dvije od tih centralno-surround struktura (Prošireni podaci, slika 1-1).
• Što se tiče zrelih KC-a, 86 posto i 88 posto njih uspostavlja sinapse sa lijevim i desnim DAN-i1 neuronom, respektivno, a 78 posto i 74 posto sa lijevim i desnim MBON-i1 neuronom, respektivno. Pojedinačni KC imaju medijane od 4 KC!DAN-i1, 4 DAN-i1!KC i 5 KC!MBON-i1 sinapsi (Eichler et al., 2017; za više detalja o DAN-i1, vidi Saumweber et al., 2018. ). Prema dendrogramima svih pojedinačnih KC, KC!DAN-i1, DAN-i1!KC i KC! Čini se da su MBON-i1 sinapse pomiješane bez očiglednih podjela u nizu KC-a, kao i sinapse sa lijevim i desnim DAN-i1neuronom, te lijevim i desnim MBON-i1neuronom (ExtendedDataFig.2-3).
Zajedno, ove analize otkrivaju detaljnu prostornu organizaciju DAN-KC-MBON matrice i-pregrade. Treba napomenuti da su sinapse DAN-i1 sa svoja dva glavna cilja, KCs i MBON-i1, lokalno pomiješane unutar višestrukih struktura bogatih sinapsama duž aksonalnih grana DAN-i1, umjesto da su odvojene između njih ( Slike 2E, 4; Prošireni podaci Slika 2-1). Takva arhitektura može implicirati da DAN-i1 isporučuje korelirane, a ne nezavisno modulirane, signale KC-ovima i MBON-i1 unutar ovih struktura bogatih sinapsama.
Može se uspostaviti aktivacija istih neuronamemorijai prekinuti njegov opoziv
Zaintrigirala nas je činjenica da DAN-i1 ima dva glavna cilja, naime KCs i MBON-i1; da su njegove sinapse sa ove dve mete tako blisko izmešane; i da prirodne nagrade imaju dvije funkcije, naime, uspostavljanjememorijau treningu i da se akutno prekine ovo izražavanje ponašanjamemorijatokom testa opoziva (slika 1A) (Gerber i
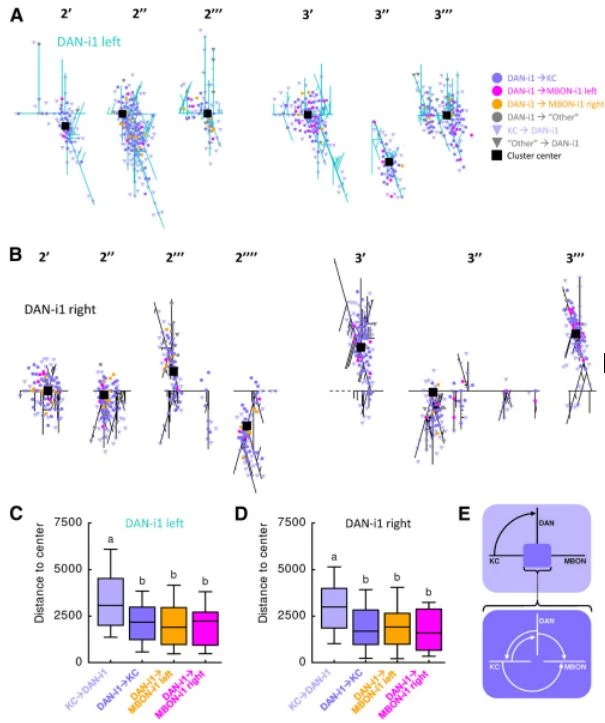
Slika 4. Organizacija sinapsi na DAN-i1 neuronu. Klaster analiza je otkrila da su sinapse od i do lijevog DAN-i1 neurona u regijama 2 i 3 (vidi sliku 2) raspoređene u šest klastera (označenih kao 29,299, itd.). Čini se da ovi klasteri imaju organizaciju centar-okruženje: prema njihovom centru nalaze se sinapse DAN!KC, KC!DAN i DAN!MBON, dok su njihove karakteristike okruženja gotovo isključivo KC!DAN sinapse. B, Isto kao u A, ali za desni DAN-i1 neuron. Može se identifikovati sedam centralno-surround struktura. C, Da bismo kvantifikovali ovu organizaciju sinapsi, odredili smo udaljenost (u dužini kabla duž neurona) različitih tipova sinapsi do centra njihovog odgovarajućeg klastera i otkrili da su KC!DAN sinapse dalje od centra od svih drugih tipova sinapsi. Ovo potvrđuje organizaciju klastera kao centar-surround strukture. D, Isto kao u C, ali za desni DAN-i1 neuron. E, Šematska skica centralno-surround strukture (gore) i uvećanje veza u centru (dole). Različita slova iznad dijagrama okvira ukazuju na značajnost u paru (Mann-Whitney U test, str, 0.05, ispravljeno prema Bonferroni-Holmu). Svi statistički testovi i njihovi rezultati se izvještavaju zajedno sa izvornim podacima na slici proširenih podataka 1-1.

cistanche pharma special
Hendel, 2006; Schleyer et al., 2011, 2013, 2015a,b, 2018; Pajsije i dr., 2017.). Stoga smo se zapitali da li optogenetska aktivacija DAN-a u treningu i tokom testa može dati ove dvije funkcije. Počeli smo koristeći 58E02- Gal4 soj pokretača koji pokriva DAN-i1 plus dva DAN-a koji inerviraju druge odjeljke medijalnog režnja (slika 5A, B) (Rohwedder et al., 2016.) i UAS-ChR{ {14}}XXL kao efektorski soj (Dawydow et al., 2014). 58E02-DAN-ovi su aktivirani ili upareni ili neupareni sa mirisom na treningu, a razlika u preferenciji mirisa u naknadnom testu prisjećanja korištena je za kvantifikaciju asocijativnostimemorijapreko PI. Uočili smo pozitivne PI rezultate koji ukazuju na asocijativnost apetitamemorijau eksperimentalnom genotipu, dok genetske kontrole heterozigotne samo za transgeni efektor ili konstrukt pokretača nisu pokazalememorija(Sl. 6A, gornje, crno popunjene kutije) (Rohwedder et al., 2016). Dakle, 58E02-DAN aktivacija tokom treninga može dati signal nagrade za asocijativnumemorijaformiranje.
Zatim smo ponovili eksperiment, ali smo aktivirali i 58E02-DAN tokom testa opoziva. Time su smanjene PI vrijednosti (tjmemorijapretraživanje bazirano na pretraživanju) na otprilike polovinu (slika 6A, gornji, plavo popunjeni okviri; za replikaciju ovog rezultata, vidi sliku 6C). Kritično, baš kao što je slučaj sa prirodnim nagradama (slika 1B) (Schleyer et al., 2011, 2015a,b), 58E02-DAN aktivacija nije utjecala na urođeno olfaktorno ponašanje (slika 6A, dolje). Stoga, 58E02- DAN aktivacija također može obezbijediti signal za akutni završetak pretrage tokom testa opoziva.
Prethodni eksperimenti pokazuju da tri 58E02- DAN-a mogu dati ista dva signala kao prirodnu nagradu (tj.

Slika 5. Obrazac ekspresije transgena sojeva pokretača 58E02-DAN i 864-DAN. A, B, Prethodna analiza zasnovana na flip-out soj pokretača 58E02-DAN identifikovala je neurone DAN-h1, DAN-i1 i DAN-j1 (takođe nazvane pPAM1, pPAM3 i pPAM4), kao kao i jedan dodatni neuron izvan tijela gljive (Rohwedder et al., 2016). Ovaj obrazac je potvrđen: naprezanje pokretača je prešlo na (A1-A5) pJFRC-10xUAS-IVS-mCD8::GFP ili (B1-B4) UAS-ChR{{ 27}}XXL. A1, B1, Signal a-GFP ili a-ChR antitela, respektivno. A2, B2, Signal pozadinskog bojenja preko a-FASII ili a-HRP antitela, respektivno. A3, B3, spajanje odgovarajućih signala. A4, B4, A djelomična z projekcija otkriva snažnu inervaciju medijalnog režnja tijela gljive. A5, Nije otkrivena inervacija bočnog slijepog crijeva (strelica). C, D, 864-Navedeno je da se soj pokretača DAN snažno izražava u DAN-i1 (Saumweber et al., 2018). Ovdje smo ga prešli na (C1-C5) pJFRC-10xUAS-IVS-mCD8::GFP ili (D1-D4) UAS-ChR2-XXL. C1, D1, Signal a-GFP ili a-ChR antitela, respektivno. C2, D2, Signal pozadinskog bojenja preko a-FASII ili a-HRP antitela, respektivno. C3, D3, spajanje odgovarajućih signala. C4, D4, djelomična z projekcija otkriva snažnu inervaciju i-kompartmenta u obje hemisfere (strelice), potvrđujući ekspresiju u DAN-i1. C5, Kao što je ranije objavljeno (Saumweber et al., 2018), naprezanje pokretača se povremeno izražava u dodatnim neuronima, ali ako je tako, obično u samo jednoj hemisferi mozga, iu neuronima koji se razlikuju po identitetu između preparata. Relativno najčešće smo uočili neuron MBON-d1, koji inervira lateralni apendiks u jednoj hemisferi (strelica). Za više životinja koje se koriste za naš grupni test, malo je vjerovatno da će takav stohastički dodatni izraz izazvati sistematske efekte.
signal za nagradu tokom treninga i signal za završetak pretrage tokom testa opoziva). Međutim, ostaje nejasno da li svaki od tri DAN-a daje oba signala ili postoji podjela rada, pri čemu su različiti DAN-ovi odgovorni za signal nagrade i signal za završetak pretrage. Stoga smo odabrali split-Gal4 soj pokretača 864, koji podržava snažnu i pouzdanu ekspresiju transgena samo u jednom od DAN-ova pokrivenih 58E02-DAN, DAN-i1 neuronom, u obje hemisfere ( Slika 5C, D) (Saumweber et al., 2018). Asocijativna 864-DAN aktivacija na treningu uspostavila je pozitivne indekse učinka (tj.memorija-bazirana pretraga; Sl. 6B, gornje, crno popunjene kutije) (Saumweber et al., 2018). Aktiviranje 864-DAN-a također tokom testa opoziva prekinulo je ovomemorija-pretraga zasnovana na (Sl.6B, gornji, plavo popunjeni okviri). Tri nezavisna skupa podataka potvrđuju zapažanje ugađanja pretrage (slika 6D–F). 864-DAN aktivacija nije utjecala na urođeno olfaktorno ponašanje (slika 6B, dolje).
Ranije je utvrđeno da aktivnost DAN-a između treninga i testa prisjećanja (tj. tokom perioda zadržavanja) promoviše zaboravljanje kod odraslih D. melanogaster (Berry et al., 2012, 2015; Shuai et al., 2015; Aso i Rubin, 2016.). Stoga smo se pitali da li bi, u našoj paradigmi, 864-DAN aktivnost promovirala zaboravljanje, za razliku od akutnog prekida pretraživanja zasnovanog na memoriji i napuštanjamemorijanetaknut. Da bi se testirala ova mogućnost, larve su obučene kao i prije, ali prije opoziva


Slika 6. Može se uspostaviti aktivacija istih neuronamemorijai prekinuti njegov opoziv. A Top, Larve su obučene sa mirisom predstavljenim bilo upareno ili neupareno sa 58E02-DAN aktivacijom plavim svjetlom. U testu prisjećanja, pozitivne PI vrijednosti u eksperimentalnom genotipu, ali ne i u genetskim kontrolama, ukazuju na naučeno ponašanje pretraživanja zasnovano na asocijativnoj memoriji za miris (krajnje lijevo polje). Dakle, tokom treninga, 58E02-DAN aktivacija može posredovati u signalu nagrade. Thememorija-bazirana pretraga eksperimentalnog genotipa je ugašena kada je 58E02-DAN aktiviran plavim svjetlom tokom testa opoziva (krajnje lijevo plavo popunjeno polje). Stoga, 58E02 aktivacija može također dati signal završetka pretraživanja. Veličine uzoraka: 16, 15, 17, 18, 15, 18. Na dnu, larve su testirane na urođene preferencije mirisa, bilo u odsustvu ili u prisustvu plave svjetlosti. Svi genotipovi su preferirali miris podjednako snažno u oba uslova, što sugerira da aktivacija 58E02-DAN nije imala utjecaja na urođenu preferenciju mirisa. Veličine uzoraka: po 24. B, Isto kao u A, ali sa 864-DAN aktivacijom plavim svjetlom. Vrh, pozitivan PI, i takomemorija-bazirana pretraga, uočena je samo u eksperimentalnom genotipu i samo kada je test prisjećanja obavljen u mraku. Veličine uzoraka: 19, 19, 19, 19, 19, 20. Donji dio, 864-DAN aktivacija nije imala utjecaja na preferenciju urođenih mirisa. Veličine uzoraka: po 16. C, U replikaciji eksperimenta prikazanog u A (gore) za eksperimentalni genotip, larve su pokazalememorija-bazirana pretraga u mraku. Kada je 58E02-DAN aktiviran plavim svjetlom tokom testa opoziva, ova pretraga je ugašena. Veličine uzoraka: 15, 16. D, U replikaciji eksperimenta prikazanom na B (gore) za eksperimentalni genotip, larve su pokazalememorija-bazirana pretraga u mraku. Kada je 864-DAN aktiviran tokom testa opoziva, ovo pretraživanje je prekinuto. Veličine uzoraka: 28, 28. E, U daljoj replikaciji D, test je izveden na Petrijevoj posudi unutrašnjeg prečnika 9 cm umjesto 15 cm.Memorija-bazirano pretraživanje tokom testa opoziva je uočeno u mraku i, u ovom slučaju, djelimično je ugašeno kroz 864-DAN aktivaciju. Veličine uzoraka: 22, 22. F, Larve su obučene u diferencijalnoj verziji eksperimenta sa dva mirisa, koristeći n-amil acetat razrijeđen 1:50 i nerazrijeđeni 1-oktanol. Test opoziva je izveden na Petrijevoj posudi unutrašnjeg prečnika 9 cm. Thememorija-zasnovano pretraživanje je uočeno u mraku i ugašeno je 864-DAN aktivacijom. Veličine uzoraka: 26, 26. Različita slova iznad dijagrama okvira ukazuju na značajnost u paru (Mann-Whitney U test, p,0.05, ispravljeno prema Bonferroni-Holmu). *Značajnost od nule (test znaka jednog uzorka, p, 0.05, ispravljeno prema Bonferroni-Holmu). ns: Neznačajnost u svim eksperimentalnim uslovima (Kruskal-Wallis-test, str. 0,05). Svi statistički testovi i njihovi rezultati se izvještavaju zajedno sa izvornim podacima na slici proširenih podataka 1-1.

Slika 7. Aktivacija 864-DAN-a između treninga i testa prisjećanja ne poboljšava zaboravljanje ili nestanak. Grupa larvi je obučena kao na slici 6. Zatim su larve držane ili u mraku ili u plavom svjetlu 3 min (Čekajte) i potom su testirane. Kada je taj test opoziva proveden u mraku, amemorija-bazirana pretraga je uočena nezavisno od svjetlosnog stanja, a samim tim i nezavisno od 864-DAN aktivnosti, tokom faze čekanja (lijevi i srednji dijagram polja). Potvrdili smo da i nakon takvog perioda čekanja 864- aktivacija DAN-a tokom testa opoziva prestajememorija-pretraga zasnovana na (desno polje). Veličine uzoraka: 25, 24, 19. B, Isto kao u A, ali ovaj put sa mirisom prisutnim tokom perioda čekanja. Veličine uzoraka: po 28. Različita slova iznad dijagrama okvira ukazuju na značajnost u parovima (Mann-Whitney U test, p, 0.05, ispravljeno prema Bonferroni-Holmu). *Značajnost od nule (test znaka jednog uzorka, p, 0,05, ispravljeno prema Bonferroni-Holm). Svi statistički testovi i njihovi rezultati se izvještavaju zajedno sa izvornim podacima na slici proširenih podataka 1-1.

cistanche pharma special


