Kaempferol ublažava oštećenje LD-mitohondrija promicanjem autofagije: Implikacije kod Parkinsonove bolesti 1. dio
Mar 23, 2022
Molimo kontaktirajteoscar.xiao@wecistanche.comza više informacija
sažetak:Novi dokazi ukazuju na to da neočekivano taloženje lipidnih kapljica (LD) i peroksidacija mogu ubrzati stres organela i igraju ključnu ulogu u patogenezi neurodegenerativnih bolesti (NDD). U našoj prethodnoj studiji, potvrdili smo da je kempferol (Ka), prirodni mali molekul flavonoida, pokazao neuroprotektivne efekte na miševe sa Parkinsonovom bolešću (PD) izazvanom LPS-om. Osim toga, prethodne studije su pokazale da autofagija igra važnu ulogu u regulaciji ćelijskog taloženja LD. U trenutnoj studiji, pokazali smo da je Ka štitio od gubitka neurona i deficita u ponašanju kod MPTP/p-indukovanih PD miševa, praćeno smanjenim lipidnim oksidativnim stresom u substantia nigra pars compacta (SNpc). U kultivisanim neuronskim ćelijama, Ka je pokazao relativno siguran raspon koncentracije i značajno potisnuo akumulaciju LD i ćelijsku apoptozu izazvanu MPP plus . Dalja studija je pokazala da je zaštitni učinak Ka ovisio o autofagiji, posebno lipofagiji. Kritično, Ka je promovirao autofagiju da posreduje u degradaciji LD u lizosomima, što je zatim ublažilo taloženje lipida i peroksidaciju i rezultirajuće oštećenje mitohondrija, posljedično smanjenje neuronske smrti. Štaviše, AAV-shAtg5- posredovano Atg5 nokdaun je ukinuo neuroprotektivne efekte Ka protiv oksidacije lipida kod PD miševa. Ovaj rad pokazuje da Ka sprečava dopaminergičku neuronsku degeneraciju u PD putem inhibicije oštećenja mitohondrija posredovanih lipidnom peroksidacijom promicanjem ofagije usana i pruža potencijalnu novu terapijsku strategiju za PD i srodne NDD.

Molimo kliknite ovdje da saznate više
1. Uvod
Parkinsonova bolest (PD) je uobičajena neurodegenerativna bolest (NDD) koja se patološki karakteriše progresivnim gubitkom dopaminergičkih (DA) neurona u substantia nigra pars compacta (SNpc). Iako tačna etiologija i prirodni tok ove bolesti tek treba da budu u potpunosti razjašnjeni,brojneprocesi i disfunkcije na nivou sistema, uključujući mitohondrijalne funkcije, homeostazu dopamina, neuroinflamaciju i autofagiju, uključeni su u patogenezu PD [1,2]. Nedavni izvještaji su otkrili da je to povezano s lipidnim kapljicama (LD).lipotoksičnostmogu učestvovati u patologiji PD [3,4]. LD su visoko dinamične organele koje izlaze iz membrane endoplazmatskog retikuluma (ER) i normalno služe kao intracelularna mjesta skladištenja neutralnih lipida [5]. Nedavno se pokazalo da LD imaju mnogo širu ulogu od skladištenja masnih kiselina (FA) i da učestvuju u mnogim bolestima. Na primjer, mijeloične stanice, uključujući makrofage, leukocite i eozinofile, formiraju LD kao odgovor na upalu i stres, a LD su mjesta proizvodnje i skladištenja inflamatornih citokina i dalje su uključeni u prezentaciju antigena i klirens patogena [6]. Važno je da se kod ateroskleroze pokazalo da su pjenaste ćelije bogate LD štetne u svim stadijumima bolesti [7].

Cistanche može poboljšati imunitet
Međutim, LD nisu opširno proučavani u centralnom nervnom sistemu (CNS), sa nekoliko radova koji izveštavaju o histološkom prisustvu LD u ljudskom moždanom tkivu [8,9]. Uprkos tome, LD mogu imati važne funkcije u mozgu, jer su nedavne studije potvrdile da agregirani LD u gliji ubrzavaju neurodegeneraciju u modelu Drosophila [10]. Nedavno je objavljeno da su kod miševa, uljno crvene O-pozitivne ćelije opterećene lipidima, uključujući neurone, glijalni fibrilarni kiseli protein (GFAP) plus astrocite, i ionizirani adapterski molekul koji vezuje kalcij-1 (IBA{{7} }) plus mikroglija, prisutni su u mnogim regijama mozga i pokazalo se da učestvuju u procesima povezanim sa godinama [1]. Naš prethodni rad je također pokazao povećanu akumulaciju LD u mozgu u modelu PD miša [12]. Uzeti zajedno, ove studije sugeriraju da LD mogu biti uključeni u patogenezu PD, kao i druge NDD.
Obično se unutarćelijski LD razgrađuju ulizozomii isporučuju FA u mitohondrije za njihovu potrošnju kao alternativni izvor energije tokom perioda iscrpljivanja nutrijenata [13]. Međutim, neuroni imaju nizak kapacitet za potrošnju mitohondrijske FA za proizvodnju energije [14]. Ova karakteristika čini neurone posebno osjetljivim na akumulaciju i peroksidaciju LD. Nadalje, akumulacija LD povećava brzinu oksidacije FA i nameće uporan pritisak na mitohondrijski lanac transporta elektrona, što povećava proizvodnju reaktivnih vrsta kisika (ROS) kompleksima I i II transportnog lanca elektrona [15] kako bi se pojačao oksidativni stres. Preopterećenje lipidima također dovodi do proizvodnje ROS od strane ekstramitohondrijskih izvora kao što su nikotinamid adenin dinukleotid fosfat (NADPH)oksidaze i drugi oksidativnienzimi. U kombinaciji sa smanjenom ekspresijom antioksidativnih enzima i niskim kapacitetom za potrošnju FA u neuronima, akumulacija LD posreduje u oksidativnom stresu i može dalje dovesti do oštećenja mitohondrija,lizozomska disfunkcija, defektna autofagija i aktivacija upalnih odgovora [6,17]. Osim ako se akumulirani LD ne mogu inhibirati ili ukloniti, visoko aktivni neuroni prolaze kroz patofiziologiju, što dovodi do neurodegeneracije [17]. Dokazi ukazuju da katabolički proces posredovan lizozomima nazvan autofagija igra ključnu ulogu u održavanju ćelijske homeostaze LD u više tkiva [17,18]. Detaljnije, LD se mogu selektivno izdvojiti u autofagozome i dostaviti u lizozome radi razgradnje lizosomskim kiselim lipazama, proces koji je posebno poznat kao lipofagija [19]. Stoga, ciljanje na LD i njihov put autofagnog uklanjanja može predstavljati novi pristup upravljanju neurodegeneracijom.
Proučavanje prirodnih proizvoda i dijetetskih agenasa kao izvora potencijalnih NDD tretmana i strategija zadobilo je ogroman interes posljednjih godina [20]. Kaempferol (Ka) je prirodna polifenolna mala molekula koja se može naći u velikom broju kineskih ljekovitih biljaka i prehrambenih izvora [21]. Prijavljeno je da Ka ima antibakterijske, anti-aging i imunomodulatorne efekte, kao i antioksidativne i neuroprotektivne aktivnosti [20,22,23]. Ranije je prijavljeno da Ka inhibira upalu u BV2 mikroglijalnim ćelijama in vitro [24] i povećava otpornost DA neurona na neuroinflamaciju in vivo [25]. Međutim, efekat Kaon LD na PD još nije istražen.
S obzirom na važnost LD i intimnu vezu između LD, mitohondrija i autofagije [16], koji su svi uključeni u PD, pretpostavljamo da Ka inhibira LD peroksidaciju i sprječava neurodegeneraciju DA u PD. U ovoj studiji, pokazali smo da Ka značajno štiti od neurodegeneracije u mišjem PD modelu inhibirajući akumulaciju LD. Dalja studija je otkrila da je Ka pokrenuo autofagiju i smanjio nakupljanje oksidiranih LD-a kako bi ublažio mitohondrijalnu disfunkciju i proizvodnju mitohondrijalnih ROS (mtROS), čime je spriječio neuronsku apoptotičku smrt. Nalazi dobiveni u ovoj studiji mogu pomoći u direktnim kliničkim odlukama u vezi s upotrebom prirodnog molekula Ka u NDD kao što je PD.
2. Materijali i metode
2.1. Eksperimentalne životinje
C57BL/6J miševi (mužjaci, 4-mjesečni) su dobijeni od Nanjing Medical University Animal Core (Nanjing). Miševi su održavani i uzgajani u Centru za resurse za životinje Medicinskog fakulteta Medicinskog univerziteta u Nanjingu, iu objektu za životinje u bolnici Nanjing Drum Tower Hospital, miševi imaju slobodan pristup hrani i vodi u prostoriji sa temperaturom okoline od 22 stepena ± 2 stepena C i ciklus svjetlo/mrak od 12:12 h. Sve procedure na životinjama sprovedene su u skladu sa smjernicama Vodiča Nacionalnog instituta za zdravlje za njegu i upotrebu laboratorijskih životinja.
2.2. Reagensi
MPTP(M0896),3-MA (M9281),penicillin-streptomycin (V900929), sodium pentobarbital, and probenecid were purchased from Sigma-Aldrich (St. Louis, MO, USA). Kaempferol (HPLC> 95%)for in vivo treatment was purchased from Nanjing Jingzhu Biotechnology Co., Ltd (Nanjing, China), kaempferol (HPLC>99.0 posto ,96,353)za in vitro eksperimente dobijeno je od Sigma-Aldrich (St. Louis, MO, SAD). BODIPY 493/503(D3922), BODIPY 581/591 C11 (D3861), DHE (D11347) kupljeni su od Thermo Fisher Scientifica. Za eksperimente na životinjama, Ka je otopljen u otopini od 10 posto DMSO u 16 posto SBE- -CD u sterilnoj fiziološkoj otopini. Za eksperimente na ćelijama, Ka je pripremljen u DMSO (Sigma-Aldrich) i PBS (konačna koncentracija DMSO je 0,01 posto), pH 7,4.
2.3. Indukcija i tretman mišjeg modela PD izazvanog metil-4-fenil-1,2,3,6-tetrahidropiridinom (MPTP)
Da bi se procijenili efekti Ka u PD modelu MPTP/p-toksičnosti, miševi (mužjaci, u dobi od 4-5 mjeseci) nasumično su podijeljeni u grupu tretiranu fiziološkim rastvorom, grupu tretiranu MPTP, MPTP plus Ka-liječenu grupa, a samo Ka tretirana grupa. U grupi tretiranoj MPTP-om, miševi su primili kroničnu primjenu MPTP-a po protokolu sličnom onom prethodno opisanom [26]: MPTP je otopljen u fiziološkoj otopini i ubrizgan supkutano u dozi od 25 mg/kg, a zatim 250 mg/kg probenecida (otopljenog u dimetil sulfoksidu) intraperitonealna (ip) injekcija u intervalima od 1 h svakih 3,5 dana u periodu od 5 sedmica. Kontrolni miševi su primili fiziološku otopinu i injekciju probenecida. U grupi tretiranoj MPTP plus Ka, miševi su primali Ka (50 mg/kg, jedna injekcija dnevno tokom eksperimenata, Jingzhu Biotechnology, Nanjing, Kina) intraperitonealno (ip) dnevno 3 dana prije tretmana MPTP i preko 5 MPTP nedelje injekcija. Sedmicu nakon posljednje injekcije MPTP-a, miševi su podvrgnuti testiranju ponašanja zaslijepljeni grupama. Nakon toga, svi miševi su anestezirani sa 40 mg/kg natrijum pentobarbitala i žrtvovani za detekciju moždanih proteina i imuno-histohemiju ili qPCR analizu.
2.4. In vivo stereotaksična hirurgija i eksperimentalni tretmani
Stereotaksična operacija pod anestezijom natrijum pentobarbitalom (40 mg/kg, ip) izvedena je kako je opisano [25]. Atg5 miša i kontrolna shRNA transficirani su vektorima pakovanja (AAV-U6-CMV-shR-NA-EGFP) da bi se generirao AAV. Za mikroinjekciju, anestezirani miševi se stavljaju u stereotaksički aparat. Ubrizgan im je 1μL AAV staklenom elektrodom usmjerenom na DG(AP:-0.3 mm; ML:±0.13 mm; DV:-0.45 mm) na brzina od 0,25 μL/min Zatim je igla zadržana još 2-min 2 sedmice nakon mikroinjekcije virusa, miševi su podvrgnuti MPTP-indukovanom PD modelu provodljivosti i (ili)Ka tretmanu.
Atg5 shRNA je dobijena od Hanbio Biotechnology (Shanghai, China) Co., Ltd. Za Atg5 tišinu, prajmeri su prikazani u dodatnoj tabeli 1.

2.5. Analiza ponašanja
Tjedan dana nakon završne injekcije MPTP-a ili fiziološkog rastvora, rotator test i test na stubu su izvedeni kao što je opisano ranije [27]. Za rotacijski test, miševi su aklimatizirani na rotarod u dva pokusa (6 min sa ubrzanom brzinom od 12-20 o/min) dnevno 2 uzastopna dana prije početka eksperimenta. Zatim su miševi testirani na 20 o/min u trajanju od 300 s druga 3 uzastopna dana. Latencija pada je zabeležena korišćenjem Rotarod sistema za analizu (Jiliang, Šangaj, Kina). Za test na stubu, miševi su postavljeni glavom gore na vrh vertikalnog drvenog stuba (grube površine, visine 50 cm, prečnika 1 cm). Svi miševi su navikli na aparat 2 dana prije testiranja, a zatim testirani tri puta trećeg dana. Zabilježeno je ukupno vrijeme (T-ukupno, dok miš nije došao do poda sa svoje četiri šape) i vrijeme okretanja (T-okretanje, da se miš potpuno okrene glavom prema dolje). Eksperiment je zaslijepljen za grupe miševa za svako testiranje ponašanja i test je izveden tri puta.
2.6. Sakupljanje uzoraka mozga
Nakon završnih testova ponašanja, miševi su anestezirani natrijum pentobarbitalom (40 mg/kg, ip). Za qPCR, Western blotting i tečnu hromatografiju visokih performansi (HPLC), cijeli mozgovi su brzo ekstrahirani iz životinja, a zatim su tkiva srednjeg mozga i strijatuma brzo secirana, prethodno zamrznuta tekućim dušikom. Svi uzorci su pohranjeni na -80 stepeni do analize.
Za imunohistohemijsku analizu, miševi su perfuzirani transkardijalno sa 4 posto paraformaldehida (PFA). Mozgovi su ekstrahovani, naknadno fiksirani, dehidrirani, ugrađeni u OCT (Tissue-Tek), a serijski dijelovi mozga su kriosecirani (30 μm po komadu) kroz svaki cijeli sloj i srednji mozak pomoću mikrotoma za zamrzavanje (Leica CM1950, Njemačka Nussloch, ). Svi dijelovi su sakupljeni u šest odvojenih serija, a kriške mozga su pohranjene u 50 posto glicerina i zamrznute na -20 stepeni do analize.
Za TEM, miševi su perfuzirani sa 2,5 posto glutaraldehida i 2 posto paraformaldehida kao što je opisano 【12】. Mala porcija (<1 mm²)="" of="" the="" mesencephalon="" was="" carefully="" sectioned="" and="" incubated="" in="" the="" same="" fixative="" for="" 2="" h="" at="" 4°c.="" specimens="" were="" postfixed="" in="" 1%="" osmium="" tetroxide,="" stained="" in="" aqueous="" uranyl="" acetate,="" and="" then="" dehydrated="" and="" embedded="" in="" epoxy="" resin.="" ultrathin="" sections="" were="" stained="" using="" lead="" citrate="" and="" examined="" with="" a="" transmission="" electron="" microscope(jem-1010,="" tokyo,="">
2.6. Imunohistohemijska analiza
Rezovi mozga su isprani u PBS-u, a zatim sa 3% H2O, tokom 10 min, a zatim inkubirani sa 0.3% Triton X-100 u PBS-u sa dodatkom 5% BSA tokom 1 h. Nakon toga, stakalca su inkubirana sa primarnim antitelima na 4 stepena preko noći u PBS-u koji sadrži 5 procenata BSA na 4 stepena preko noći, zatim isprana i inkubirana u sekundarnim antitelima 1 h na sobnoj temperaturi, nakon čega je usledila inkubacija sa diaminobenzidinom (DAB) ili montaža u DAPI (Life Technologies, Cat P36931) kao imunofluorescentno bojenje u trajanju od 5 min. Za Nissl bojenje, stakalca su spojena u rastvoru krezil violet(CV) (0,1 g krezil ljubičaste, 99 ml H,O i 1 procentna octena kiselina 1 ml) 30 min na sobnoj temperaturi, a zatim dehidrirano alkoholom i ksilenom. Slike su posmatrane i fotografije su snimljene pod mikroskopom Olympus BX52 (Olympus America Inc., Melville, NY, Sjedinjene Države). Ukupan broj TH-pozitivnih i Nissl-pozitivnih neurona u SNpc-u dobijen je serološki metodom optičkog frakcioniranja sa MicroBrightField Stereo-Investigator softverom (MicroBrightField, Williston, VT, USA).
2.7. Analiza tečnom hromatografijom visokih performansi (HPLC).
Miševi strijatalni uzorci su homogenizirani sa {{0}}.1 M perhlornom kiselinom (1 mg tkiva u 100 μL perhlorne kiseline) i 0,1 mM EDTA, tretirani ultrazvukom i centrifugirani na 20,000 o/min tokom 30 min kao što je objavljeno [27]. Zatim su sakupljene supernatantne tekućine za mjerenje. Mobilna faza je miješani rastvor koji se sastoji od 90 mM monobaznog natrijum fosfata, 1,7 mM 1- oktan sulfonske kiseline, 50 mM citrata, 50 μM EDTA, 10 posto acetonitrila sa brzinom protoka od 0,2 ml/min. Paralelno, za kvantitativni proračun standardne krive, pripremljeni su osnovni standardni rastvori za dopamin i dihidroksi-fenil octenu kiselinu (DOPAC) (Sigma-Aldrich, USA) u 0,1 M HClO4. Ubrizgano je 10 ul pripremljenog supernatanta ili standardne otopine u mobilnu fazu i testiran elektrohemijskim detektorom ESA Coulochem ⅢI (Coulochem III, Thermo Fisher Scientific). Izmjereni su uzorci i kvantificirani su pikovi. Koncentracije monoamina su kvantificirane poređenjem sa standardom korištenjem softvera ClarityChrom (Knauer, Njemačka), a zatim sadržaj u sloju je konvertovan prema omjeru razblaženja.Standardna kriva DA i DOPAC prikazana je na dopunskim slikama 1a i b.
2.8. Ćelijske kulture i tretmani
Kulture mezencefalnih primarnih neurona provedene su kao što je prethodno opisano [12]. Ukratko, mezencefalna tkiva miševa C57BL/6 embrionalnog dana 14/15 (E14/15) su pažljivo uklonjena, mehanički razdvojena kako bi se uklonile membrane i velike krvne žile, a zatim secirao. Zatim su digestirane sa tripsinom-EDTA (Amresco, Solon, OH, USA) i zatim filtrirane kroz 100- μm filter da bi se dobila suspenzija jedne ćelije. Nakon toga, ćelije su postavljene na poli-L-lizin -prethodno obložene 12-/24-ploče sa jažicom na 2,5×10 stepen ćelija/ml koje sadrže Neurobasal medij (Cat 21103049, GibcoTM, Thermo Fisher Scientific, Rockford, SAD) dopunjen sa B27 (2 posto v:v, Cat 17504044, GibcoTM) i penicilin/streptomicin (0,5 posto v:v). Kulture su održavane u vlažnoj komori (37 stepeni, 5 posto CO2 inkubator). Medij za kulturu se mijenjao svaka 3 dana i ćelije se mogu koristiti na 7-10 dana.
Ćelijske linije: SH-SY5Y ćelijske linije su uzgajane u 10 posto FBS-a i 1 posto penicilina/streptomicina u vlažnom inkubatoru na 37 stepeni i 5 posto CO2. U eksperimentima, SH-SY5Y ćelije su tretirane MPP (200 μM) ili različitim dozama Ka (0,3,30,60,100,300,600 μM) tokom 24 h. Ka (3,10,30,60μM,3 h)primed-SH-SY5Y ćelije su stimulisane sa MPp plus (400 μM) tokom 24 h. Ka (30 μM,3 h) sa (ili bez) 3-MA (3 mM,1 h) ili -tokoferol (50 μM,1 h, Sigma-Aldrich, 47783) stimulirane su ćelije sa primesama SH-SH5Y sa MPP plus (200 μM) tokom 24 h.
2.9. CCK8 test vitalnosti ćelija
Promijenjena vitalnost ćelija Ka tretmana je otkrivena pomoću Cell Counting Kit-8(CCK-8 Kit, Selleck, Houston, TX, USA). Ukratko, SHSY5Y ćelije su zasijane u 96- ploča sa jažicom i zatim tretirana različitim koncentracijama Ka (3,30,60,100,300,600 μM) tokom 24 h. Zatim je 10 ulofa CCK{12}} reagensa dodato u svaku jažicu tokom 4 h. Konačno, apsorbancija je detektirana pomoću Multiskan Spectrum (Thermo Fisher Scientific) na 450 nm.
2.10.ATP test
Nivoi ćelijskog ATP-a su detektovani pomoću ATP Bioluminescence Assay Kit (Beyotime Biotechnology Co., Kina〕prema uputstvima proizvođača. Nakon tretmana, ćelije su lizirane i centrifugirane na 12,000 o/min 5 minuta na 4 stepena i supernatanti su sakupljeni Radni rastvor (100 μL) je dodan u 20 μL uzorka u 96- pločici sa jažicom, a luminiscencija je odmah izmjerena na automatskom čitaču mikroploče. Mjerenja iz svih uzoraka su normalizirana na koncentraciju proteina.
2.11. Na plus -K -ATPazni test
Za mjerenje Na plus -K plus -ATPaze (A070-2-2, Jiancheng, Nanjing, Kina), ćelije su sonikirane i centrifugirane na 6000 rpm tokom 10 minuta da se dobije supernatant. Dodane su reakcione otopine detekcije Na plus -K plus -ATPaze i inkubirane prema uputama proizvođača. Zatim je detektirana apsorbancija na 660 nm. Mjerenja svih uzoraka su normalizirana na koncentraciju proteina.
2.12. Western blotting analiza
Ćelije ili moždana tkiva su lizirana u RIPA puferu (50 mM Tris (pH 7,4), 150 mM NaCl, 1 posto NP-40 (FNNO021, Thermo), 0,5 posto natrijuma deoksiholat (D6750, Sigma), 0,1 posto SDS (74255, Sigma) obogaćen inhibitorima proteaze i fosfataze (Roche, Šangaj, Kina). Koncentracije proteina su određene sa Micro BCA kompletom (Beyotime, Šangaj, Kina). A {{13 }}ug protein svakog uzorka je odvojen pomoću SDS-PAGE pomoću poliakrilamidnih TGX gelova (Bio-Rad, Hercules, California, USA), a zatim prebačen na poliviniliden difluorid (PVDF) membrane (Millipore, Bedford, MA). membrane su inkubirane s različitim specifičnim primarnim antitijelima u TBST na 4 stepena preko noći, a zatim isprane i inkubirane u odgovarajućim sekundarnim antitijelima konjugiranim s peroksidazom hrena (HRP) 1 h na sobnoj temperaturi. Imunoreaktivne trake su vizualizirane i otkrivene poboljšanom detekcijom hemiluminiscencije (ECL) plus reaktiviranjem (Pierce, Thermo Fisher Scientific, Rockford, IL) i analizirano pomoću ImageQuantM LAS 4000 sistema za snimanje (GE Healthcare, Pittsburgh, PA, SAD).
2.13. Kvantitativna (Q)-i reverzna transkripcija (RT)-PCR u realnom vremenu
Ukupna RNK je ekstrahirana iz moždanog tkiva i kultiviranih ćelija pomoću Trizol reagensa (Invitrogen, Carlsbad, CA, USA). Reverzna transkripcija je izvršena korišćenjem kompleta reagensa TAKARA PrimeScript RT (TaKaRa, Japan). qPCR u realnom vremenu je sproveden korišćenjem SYBR Green Master Mix-a (Applied Biosystems) u StepOnePlus instrumentu (Applied Bio-systems). Prajmere je kupio i validirao General (Šangaj, Kina). Prajmeri koji se koriste za qPCR prikazani su u Dodatnoj tabeli 2.
2.14. Laktat dehidrogenaza (LDH) test
U skladu sa uputstvima proizvođača, ćelije su postavljene u 96-ploču sa 5000 ćelija/jažici, a medij za kulturu je sakupljen za mjerenje nivoa LDH pomoću kompleta za analizu (Nanjing Jiancheng Bioengineering Institute). Zatim je apsorbancija uzoraka detektirana pomoću Multiskan Spectrum-a (Thermo Fisher Scientific) na 450 nm.
2.15.BODIPY493/503, BODIPY 581/591 C11 i MitoTracker tamno crveno bojenje
Žive ćelije su isprane PBS-om i inkubirane sa 2 ug/ml BOD-IPY 493/503 (InvitrogenTM, Cat D3922) ili BODIPY 581/591 C11 (BD-Cl1)(2.0 μM , InvitrogenTM, Cat D3861)u PBS-u 15 minuta na 37 stepeni Za MitoTracker Deep Red bojenje, žive ćelije su inkubirane sa 0,5 ug/ml MitoTracker Deep Red (InvitrogenTM, Cat M22426) u PBS-u 30 minuta. Zatim ćelije na 37 stepeni su dva puta isprani u PBS-u i fiksirani u 3,5 posto PFA u trajanju od 10 minuta, nakon čega je slijedilo ispiranje i bojenje s Hoechst 33342 (Sigma, Cat B2261) u trajanju od 10 minuta prije nego što su prekrivene staklenim predmetima za snimanje. Slike su posmatrane i fotografije su snimljene fluorescentnom mikroskopijom (Olimp, Tokio, Japan).
2.16. Bojenje po Hoechstu i PI
Ćelije su obojene sa Hoechst 33,342 (1 ul razrijeđen u 500 ul PBS, Sigma, Cat B2261) i (ili) PI (0,1 ul razrijeđen u 500 ul PBS-a, Solarbio, CA1020 min) i zatim fiksiran za CA1020 i posmatrano fluorescentnom mikroskopijom (Olimp, Tokio, Japan).
2.17. Protočna citometrija
Ćelije su digestirane i isprane sa D-hank-om, a zatim obojene aneksinom V-FITC (5 ul razrijeđenih u 500 ul PBS)/PI (0,1 ul razrijeđenog u 500 ul PBS) kompleta za apoptozu (CA1020, Solarbio, Peking, Chian) prema protokolu proizvođača. Nakon toga, apoptotičke ćelije su analizirane protočnom citometrijom (guava easyCyteTM 8, Millipore, SAD). Mjerenja ROS-a mitohondrija i potencijala mitohondrijske membrane izvedena su kako je objavljeno 【12】. SH-SY5Y ćelije su obojene sa MitoSOX (2,5 μM, Invitrogen, USA) ili sa Jul (10 ug/ml, T-3168, Invitrogen, USA) na 37 stepeni tokom 30 minuta. Nakon dva puta ispiranja sa PBS-om, ćelije su zatim resuspendirane u hladnom PBS-u koji sadrži 1 posto FBS-a za analizu protočne citometrije. Podaci su analizirani pomoću FCS Express softvera (Guava Easy CyteTM8, Millipore, Hayward, Kalifornija, SAD).
2.18. Testovi disanja morskog konjića
Mitohondrijska respiratorna funkcija u živim SH-SY5Y ćelijama mjerena je pomoću analizatora ekstracelularnog fluksa Seahorse (XFe96) (Agi-lent, Santa Clara, SAD) putem promjena u brzini potrošnje kisika (OCR). SH-SY5Y ćelije zasijane pri 3×10³ ćelijama/jažici je ostavljeno da se prianjaju na ploče sa ćelijskom kulturom Seahorse i da dostignu približno 80 posto konfluentnosti u vrijeme eksperimenta. Sledećeg dana ćelije su prethodno tretirane sa Ka i zatim izložene MPp plus još 24 h. OCR je detektovan u bazalnim uslovima nakon čega je usledilo sekvencijalno dodavanje 1 μM oligomicina, 1 μM FCCP, kao i 1 μM rotenona i antimicina A.
2.19. Statistička analiza
Podaci su predstavljeni kao srednja vrijednost ± SEM. Značajnost razlike određena je Studentovim t-testom, dvosmjernom analizom varijanse ili jednosmjernom analizom varijanse (ANOVA) nakon čega je uslijedio Tukeyjev post hoc test. Razlika se smatrala značajnom kod P<>
3. Rezultati
Rezultat 1. Ka obnavlja motoričku disfunkciju i povećava nivoe dopamina u striatumu MPTP/p PD modela miševa
Da bi se istražio neuroprotektivni efekat Kaon PD patogeneze, 4-mjesečnim mužjacima C57BL/6 miševa je ubrizgan neurotoksin MPTP da bi se uspostavio MPTP/p PD model i tretirani su sa Ka (Slika la). Nakon indukcije modela, za procjenu motoričkih i bihejvioralnih performansi miševa u različitim grupama korišteni su test rotarod-a i test pole. Kao što je prikazano, vrijeme rada rotaroda je značajno smanjeno kod miševa tretiranih MPTP, a ovaj efekat je spriječio Ka (slika 1b). Ka je također obnovio deficite u ponašanju izazvane MPTP-om, što je pokazano smanjenjem vremena okretanja i ukupnog vremena u testu na stubu (sl. lc i d), bez utjecaja na tjelesnu težinu miševa (sl. le). Nadalje, HPLC analiza je pokazala da je nivo dopamina u striatumu značajno smanjen kod miševa izazvanih MPTP/p, a ovaj nivo je obnovljen tretmanom Ka (slika 1f. Ka tretman je također ublažio MPTP/p-indukovano smanjenje dihidroksila -fenil octene kiseline (DOPAC, metabolit dopamina) u striatumu (Slika 1g) Ovi rezultati sugeriraju da Ka obnavlja motoričku disfunkciju i povećava nivoe dopamina u striatumu kod MPTP-indukovanih PD miševa.

Rezultat 2. Ka ublažava gubitak DA neurona u SNpc miševa MPTP/p PD modela
Dalje, da bismo dalje procijenili neuroprotektivni učinak Kaon MPTP/p-induciranog DA neuronskog oštećenja, ispitali smo tirozin hidroksilazu (THD plus neuroni u mišjem SNpc imunobojenjem. Kao što je prikazano na slikama 2a i b, MPTP/p je izazvao značajno smanjenje u broju TH plus neurona, koji je ublažen tretmanom Ka. Nadalje, stereološki broj ukupnih neurona u SNpc, kako je definirao Nissl

Fig.1. Ka tretman ublažava motoričku disfunkciju i povećava nivoe dopamina u striatumu MPTP/p PD modela miševa.
(a) Šematski dijagram eksperimentalnog dizajna. (b) Vrijeme na štapu je mjereno za test rotaroda u tri uzastopna dana. (cd) Vrijeme potrebno za okretanje (vrijeme okretanja) i spuštanje sa motke (vrijeme penjanja) zabilježeno je za test motke. (e) Telesna težina miševa je izmerena na kraju studije. (fg) Dopamin (DA) i dihidroksi-fenil sirćetna kiselina (DOPAC) u striatumu analizirani su tečnom hromatografijom visokih performansi. Podaci su izraženi kao srednja vrijednost ± SEM.n =9-10 za svaku grupu u (b,c,d); n =6-8 za svaku grupu u (f, g).ns, nije značajno, *P<><><0.001,by one-way="" anova="" followed="" by="" tukey's="" post="" hoc="" test.="" mptp,="" 1-methyl-4-phenyl-1,2,3,6-tetrahydropyridine;="" ka,="">
bojenjem, potvrdio je da gubitak TH stanica odražava staničnu smrt, ali ne i smanjenje regulacije TH ekspresije i pokazao da je tretman Ka obnovio smanjenje broja Nissl-pozitivnih neurona u SNpc miševa tretiranih MPTP sa 43,3 posto na 25,4 posto ( Sl.2c i d). Pored toga, Ka je značajno poboljšao MPTP-indukovano smanjenje ekspresije TH i DAT proteina, kao što je izmjereno Western blottingom (slika 2e-g). Ovi dokazi potvrđuju neuroprotektivni efekat Ka na PD mišji model.
Rezultat 3. Ka smanjuje nakupljanje LD vakuola i oksidativni stres u SNpc miševa tretiranih MPTP/p
Sve veći broj dokaza pokazuje uključenost LD u NDD[10], konzistentno, naš prethodni rad je identifikovao povećane LD u SNpc kod MPTP-indukovanih PD miševa[12]. LD se mogu lako identificirati i pokazuju okrugle strukture niske gustoće s homogenim amorfnim sadržajem [28]. Normalno, LD se mogu razgraditi autofagijom kako bi se izbjegla akumulacija [29]. Da bi se istražilo da li Ka može regulisati LD u PD, akumulacija LD je analizirana transmisijskom elektronskom mikroskopijom (TEM) u SNpc kontrolnih, MPTP/p i MPTP/p plus Ka miševa. Kao što je pokazano u našem prethodnom radu [12], broj i veličina LD-a su povećani kod MPTP/p miševa u poređenju sa kontrolama tretiranim slanim rastvorom (sl. 3a i b) i značajno smanjeni kod miševa tretiranih Ka (slika 3c- e). Štaviše, kod miševa tretiranih Ka, LD su češće primećene u blizini, zatvorene ili degradirane autolizosomima, koji su definisani kao granule lipofuscina guste elektronom. Daljnje histološko bojenje TH* neurona s BODIPY, bojom koja specifično obilježava neutralne lipide i koja se obično koristi za detekciju LD-a [30], pokazalo je da su i broj i veličina BODIPY LD u SNpc-u veći kod PD miševa nego u kontrolama, i značajno su smanjeni tretmanom Ka (slika 3f-h).
Ako se LD ne mogu razgraditi na vrijeme, akumulirani LD mogu biti podvrgnuti peroksidaciji i doprinijeti mitohondrijskom ROS-posredovanom stresu [4], koji pojačava neurotoksičnost i progresiju bolesti. Stoga smo dalje ispitali profile ekspresije gena povezanih sa zaštitom od toksičnosti slobodnih FA (Gpx8), neutralizirajući oksidativne vrste, superoksidne radikale (Sod3) i vodikov peroksid (Cat) i metabolizam FA (Acsbg1 i Dbi), kako je objavljeno [31] , od kojih su svi bili upadljivo smanjeni u SNpc miševa tretiranih MPTP u poređenju sa kontrolama, a ovi efekti su poboljšani kod Ka-tretiranih PD miševa (slika 3i). Slično, MPTP/p je takođe povećao nivoe ekspresije mRNA
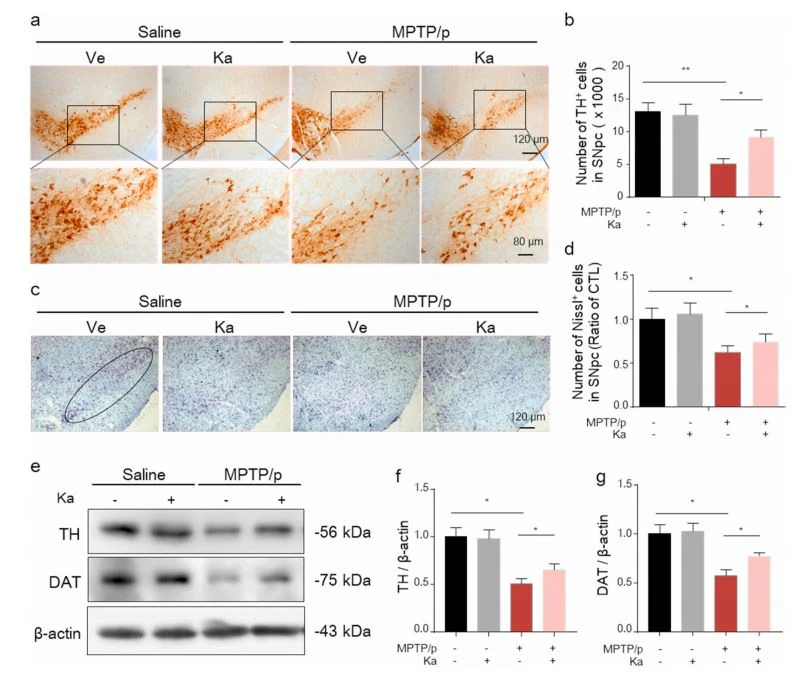
Fig.2. Ka ublažava gubitak DA neurona u SNpc miševa MPTP/p PD modela.
(ab) Mikrofotografije neurona pozitivnih na tirozin hidroksilazu(TH) (a) i stereološki broj TH-pozitivnih neurona u substantia nigra pars compacta (SNpc)(b). Trake skale su kako je naznačeno. (cd) Mikrofotografije krezil ljubičice -pozitivne ćelije(c) i stereološki broj krezil ljubičastih pozitivnih ćelija u SNpc(d). Skala bar, 120 μm. (npr.) Western blot analiza ekspresije TH i DAT proteina u SNpc (e) i kvantitativna analiza (f,g). Kvantifikovani podaci su normalizovani na kontrolnu grupu sa slanim rastvorom. Podaci su izraženi kao srednja vrijednost ± SEM.*P<0.05,><0.01,by one-way="" anova="" followed="" by="" tukey's="" post="" hoc="" test.n="4-5" for="" each="" group.="" ve,="" vehicle,="" ka,="" kaempferol;="" mptp,1-methyl-4-phenyl-1,2,3,6-tetrahydropyridine..(for="" interpretation="" of="" the="" references="" to="" color="" in="" this="" figure="" legend,="" the="" reader="" is="" referred="" to="" the="" web="" version="" of="" this="" article.)="" of="" nadph="" oxidase="" subunits="" such="" as="" noxl,="" nox2,="" and="" nox4="" in="" the="" snpc="" of="" mptp/p="" mice,="" which="" were="" further="" blunted="" by="" ka="" treatment="" (fig.="" 3j).="" taken="" together,="" these="" data="" suggest="" that="" ka="" alleviates="" mptp/p-induced="" ld="" accumulation,="" peroxidation,="" and="" ros-mediated="">
Rezultat 4. Ka štiti ćelije SH-SY5Y od apoptoze izazvane MPP plus
MPP plus, aktivni metabolit MPTP, inhibira enzime mitohondrijalnog kompleksa i uzrokuje ćelijsku smrt koja je direktno povezana sa PD[32]. Zatim smo istražili može li Ka spriječiti MPP plus indukovanu neuronsku apoptozu in vitro. Kao što je prikazano na slikama 4a i b, MPPt (400 μM, 24 h) indukovao je oslobađanje LDH iz SH-SY5Y ćelija, a Ka (30 i 60 μM) je značajno oslabio oslobađanje LDH bez uticaja na preživljavanje ćelija (Sl. 4a). Budući da je Ka izazvao značajan zaštitni efekat pri koncentraciji od 30 μM (slika 4b), koristili smo ovu koncentraciju u narednim eksperimentima.Rezultati Hoechst/PI bojenja također su pokazali da je Ka značajno smanjio postotak ćelija sa MPP plus -indukovanom kondenzacijom hromatina (sl. 4c i d) i ćelijska apoptoza, o čemu svjedoči povećan intenzitet Hoechst fluorescencije (slika 4c) i procenat Hoechst/PI obojenih ćelija (Hoechst plus /PI plus) (slika 4e). detektirano protočnom citometrijom, MPPt indukovana ćelijska apoptoza, o čemu svjedoči povećani postotak ćelija obojenih aneksinom V (AV plus /PI- i AV plus /Prt) zaštićenih Ka (slike 4f i g). Dodatno, Ka je značajno obrnuo MPP plus-inducirane promjene u ekspresiji proteina povezane s apoptozom, o čemu svjedoči pojačana regulacija B cl-2, smanjena regulacija Baxa (Slika 4hi-j) i smanjeno cijepanje kaspaze-3 (Slika 4h, k). Ovi podaci sugeriraju da Ka može ukloniti štetne efekte MPp plus na preživljavanje stanica.
Rezultat 5. Ka potiskuje MPp plus -indukovanu akumulaciju LD i peroksidaciju lipida, koji posreduju oštećenje mitohondrija u SH-SY5Y ćelijama
Nedavne studije su pokazale da neočekivana akumulacija LD može dovesti do povećanog stresa posredovanog peroksidacijom lipida i ubrzati mitohondrijalnu disfunkciju, koja potiče neurodegeneraciju [10]. Naš prethodni rad je takođe pokazao da su povećani LD u SNpc povezani sa patologijom PD kod miševa [12]. Da bismo istražili da li je zaštitni efekat Ka povezan sa akumulacijom LD in vitro, prvo smo izvršili LD-specifično bojenje u SH-SY5Y ćelijama koristeći BODIPY 493/503 i uočili povećano taloženje LD (povećani nivoi neutralnih lipida)


Slika 3. Ka je smanjio akumulaciju elektronski gustih LD vakuola i oksidaciju lipida u SNpc miševa tretiranih MPTP/p.
(ac) Reprezentativne EM slike koje prikazuju vakuole (kapljice lipida), elektron-guste autofagične vakuole koje sadrže autolizosome (ALS) ili lipofuscin koji sadrže lizosome (Lys) u SNpc miševa tretiranih fiziološkom otopinom (a), MPTP/p (b) i MPTP/p plus Ka (c). Barovi skale, 500 nm. Sa(a,b) kao što je navedeno u našem prethodnom radu (PMID:29967574). (de) Kvantifikacija elektron-svijetlih LD vakuola po neuronu u SNpc kod naznačenih miševa. n =3 miševa,10-12 neurona po grupi. (fh) Sekcije srednjeg mozga kod miševa tretiranih fiziološkim rastvorom, MPTP/p- i MPTP/p plus Ka obojeni su na BODIPY (LDs) i TH (DA neurone). Krajnji desni paneli pokazuju uvećanja BODIPY plus TH plus neurona. Strelice pokazuju LDs.(gh), Kvantifikacija BODIPY plus LD broj i veličinu. (ii) Analizirana je ekspresija mRNA gena povezanih s toksičnošću FFA (Gpx8, Sod3, Gat, Acsbg1 i Dbi)(i) i gena oksidativnog stresa (Nox1, Nox2 i Nox4)(j) u SNpc naznačenih miševa qPCR u realnom vremenu.n=4-5 po grupi, tri nezavisna eksperimenta. Podaci su izraženi kao srednja vrijednost ± SEM; ns, nije značajno, *P<><><0.001, by="" one-way="" anova="" followed="" by="" tukey's="" post="" hoc="" test.="" ka,="" kaempferol;="" mptp,="">
Ovaj članak je izvučen izhttps://doi.org/10.1016/j.redox.2021.101911Primljeno 23. novembra 2020